研报速递
结合模式、稳定性、口袋迁移与结合自由能
体系:人表皮生长因子结构域(EGF,45 残基)
配体:木犀草素(luteolin,21 个重原子)
2026 年 11 月
数据来源:LKDock 4.0 一键全流程结果
摘要
本报告分析了一套 100 ns 的全原子分子动力学模拟:人表皮生长因子(epidermal growth factor, EGF)结构域(45 个残基,编号 6–50)与黄酮类天然产物木犀草素(luteolin)的复合物。模拟采用 Amber14SB/GAFF2/TIP3P 力场、0.15 M NaCl 生理盐浓度、310 K 与 1 bar,积分步长 2 fs,每 10 ps 保存一帧,共 10 001 帧。分析覆盖稳定性、残基柔性、配体结合与口袋迁移、氢键与接触、二级结构、构象采样与结合自由能共 60 余项指标。
主要结论如下。
蛋白骨架高度稳定。以
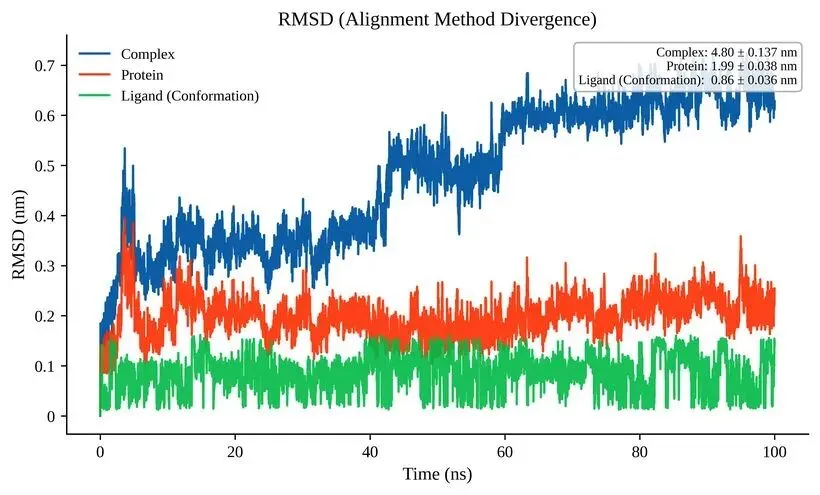
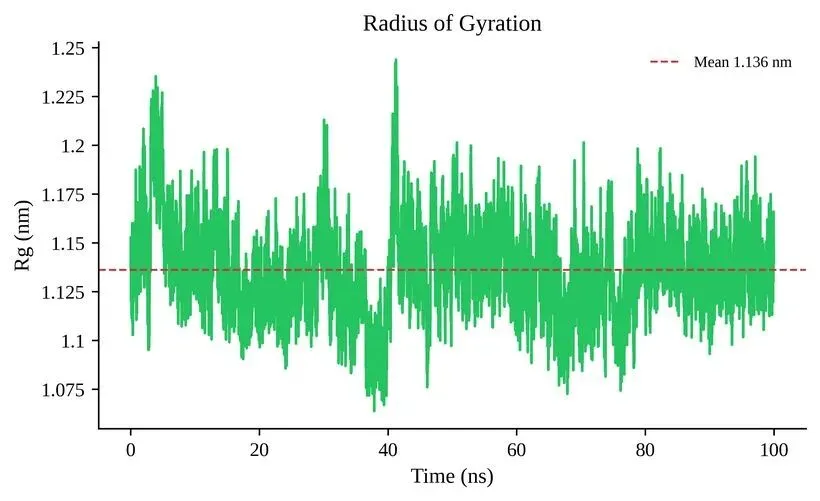
rmsd_paper为准,蛋白 Cα相对初始结构的 RMSD 全轨迹均值为 1.99 Å(标准差 0.38),37.5–100 ns 为 2.00 Å;回旋半径 Rg为 11.36 ±0.23 Å(范围 10.64–12.44 Å),DSSP 显示 β-折叠占 31.0%、α-螺旋 5.6%、无规卷曲 63.4%,与 EGF 结构域“小型 β-片层 + 多环区”的折叠特征一致。核心区无解折叠迹象。复合物 RMSD 的升高来自配体,而非蛋白。复合物 RMSD 全轨迹均值 4.80 Å、后 62.5% 为 5.69 Å(最大 7.24 Å),但同一参考下的蛋白 Cα仅 2.00 Å、配体内部构象 RMSD 仅 0.86 Å。可见“7 Å的复合物 RMSD”反映的是配体相对蛋白的位移,不能据此判断蛋白失稳。
木犀草素在 45–60 ns 离开原生口袋,并迁移到蛋白表面另一区域。受体叠合后的配体位姿 RMSD 在前 40 ns 为 4.5 Å(0–7.7 Å),50 ns 后均值 21.5 Å (10.3–26.9 Å);配体与蛋白的质心距离由 10.15 Å增至峰值 19.20 Å (41.8 ns),末帧 13.43 Å;相对质心漂移由 40 ns 的 3.37 Å增至最大 26.70 Å。但配体并未离开蛋白:全轨迹只有 59.6–59.7 ns 的 6 帧最近重原子距离 > 4.5Å,末帧仍有 96 个原子接触、7 个接触残基。因此这是“口袋迁出 + 表面再吸附”,不是进入体相溶剂的完全解离。
氢键网络随口袋迁出而瓦解。全轨迹平均氢键数 0.81 ±1.02 条/帧, 45.7% 的帧至少存在一条氢键;0–40 ns 均值为 1.80 条/帧,50 ns 之后降至 0.15 条/帧,多数帧为 0。蛋白–配体接触原子对由 0 ns 的 159 降至 100 ns 的 96 (均值 92.8),接触残基由 11 降至 7。氢键寿命中位数仅 10 ps(均值 21 ps,最长 310 ps),属典型的瞬态相互作用。
构象采样集中于单一盆地。主成分分析中 PC1、PC2 的标准差分别为 4.20 与 3.42 Å;以主链 RMSD–Rg为坐标的 3D 自由能地形图最高能垒 13.86 kcal mol−1,低能区(ΔG< 1kcal mol−1)占全部 3600 格的 12.0%(占已占据格点 16.8%),低能区对应 RMSD 1.25–2.60 Å、Rg10.86–11.68 Å。蛋白没有跨越主要势垒。
结合自由能是两态混合值。gmx_MMPBSA(GB,gbn2,0.15 M 盐)在 20 帧上给出 ΔGbind= −15.06 ± 4.39kcal mol−1(4 个并行分块合并; SEM 0.98),其中范德华贡献−18.92、静电−18.08、极性溶剂化+24.27、非极性溶剂化−2.34kcal mol−1。20 帧按 1、6、11…96 ns 取样:1–41 ns 的 9 帧(仍在前口袋)为−17.79 ± 3.34kcal mol−1,46–96 ns 的 11 帧(已迁移)为−12.83 ± 3.86kcal mol−1。因此−15.06不能解释为初始口袋的结合焓;初始口袋的估计约为−17.8kcal mol−1。该项未计入构象熵(−TΔS未计算),实质是结合焓。
需要特别说明:本体系每个条件仅一条 100 ns 轨迹,文中所有“±”均为时间标准差,反映轨迹内涨落,不是重复样本的统计误差;配体在轨迹中段离开原生口袋并迁移到表面另一区域,因此后半程的多数“结合”指标描述的是新的表面位点,而不是初始口袋。
1 体系、模拟方法与分析口径
1.1 模拟体系
研究对象为人 EGF 结构域(45 个残基,序列编号 6–50)与木犀草素(luteolin, 3′, 4′, 5, 7-四羟基黄酮,21 个重原子)的非共价复合物。体系在 0.15 M NaCl 水溶液中构建,离子化后共 18 089 个原子,采用截断八面体周期边界。木犀草素经 AM1-BCC 赋值部分电荷并由 GAFF2 参数化,蛋白使用 Amber14SB,水为 TIP3P。
模拟与采样参数(来源: 2.runs/.../gmx/md.mdp 与 run_state.json)。
1.2 轨迹处理与统计口径
轨迹先做平动与转动拟合(prod_fit.xtc),蛋白的 RMSD、RMSF、Rg、DSSP、主成分分析均基于拟合后的蛋白坐标。RMSD 采用双重口径:
整体口径:以初始结构(第 0 帧)为参考,计算复合物、蛋白 Cα、配体内部构象三条曲线。该口径用于描述“相对起始构象漂移了多少”。
平台口径:统计 37.5–100 ns(后 62.5% 轨迹)的均值与标准差,用于描述进入平台后的行为。配体在 45–60 ns 离开原生口袋,因此该口径对配体相关指标只作参考。
配体内部构象 RMSD只对配体自身原子叠合后计算,与配体在口袋中的位置无关;配体位姿 RMSD(ligand_pose_rmsd)先把受体叠合到参考结构,再计算配体重原子的位移,因此对“配体是否还在原位”敏感。两者必须分开解读,否则会把 “配体翻转/滑移”误判为“配体内部变形”。
1.3 术语与判据
氢键:供体–受体距离 ≤ 0.35nm 且 D–H⋯A 夹角 ≥ 150∘;统计每帧氢键数,并用“至少 1 条氢键的帧占比”描述网络的持续性。
接触:配体任一重原子与蛋白任一重原子距离 ≤ 0.45nm 记为一对接触。
SASA:Shrake–Rupley 算法,探针半径 0.14 nm;蛋白 SASA 按每 0.5 ns 抽样(201 帧),配体 SASA 同步抽样。
自由能地形图:以主链 RMSD 与 Rg(或 PC1/PC2)为坐标建立网格,由占用概率 p计算 ΔG= −kBTln (p/pmax),T= 310K;空格表示该格点从未被占据,不计入 ΔG统计。
结合自由能:gmx_MMPBSA,GB 模型(gbn2,igb= 8),盐浓度 0.15 M,温度 310 K,单轨迹法,取 20 帧。
1.4 报告约定
图注中给出对应文件名,正文数字均由同名 CSV 现算。由于每个条件只有一条轨迹,所有 ±为时间标准差。
 |  |
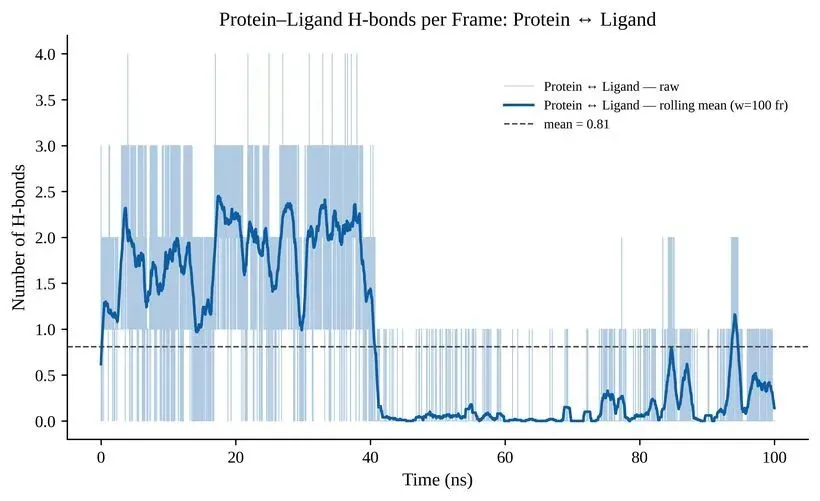 | 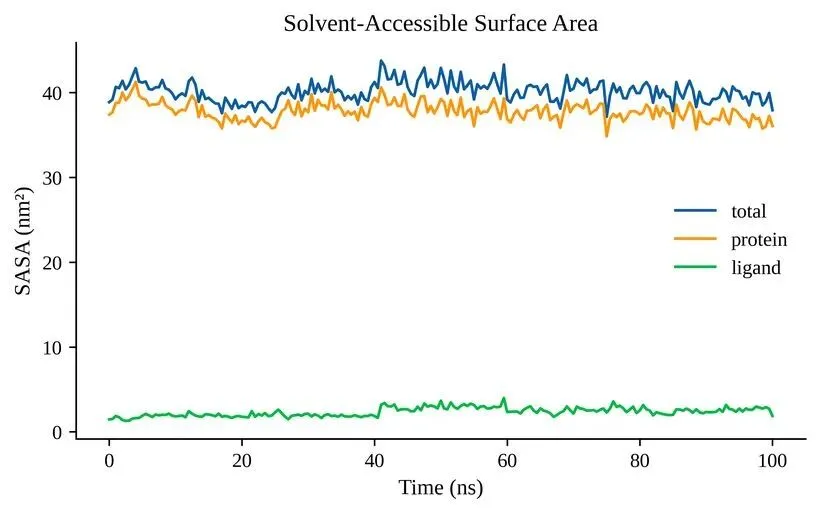 |
全轨迹关键指标总览。左上:复合物/蛋白/配体内部 RMSD(rmsd_paper);右上:回转半径(rg);左下:每帧氢键数(hbond);右下:SASA(sasa)。45–60 ns 的阶跃在氢键与 SASA 曲线上同步可见。
2 主链稳定性:RMSD 与收敛性
2.1 主链 RMSD(rmsd_paper)
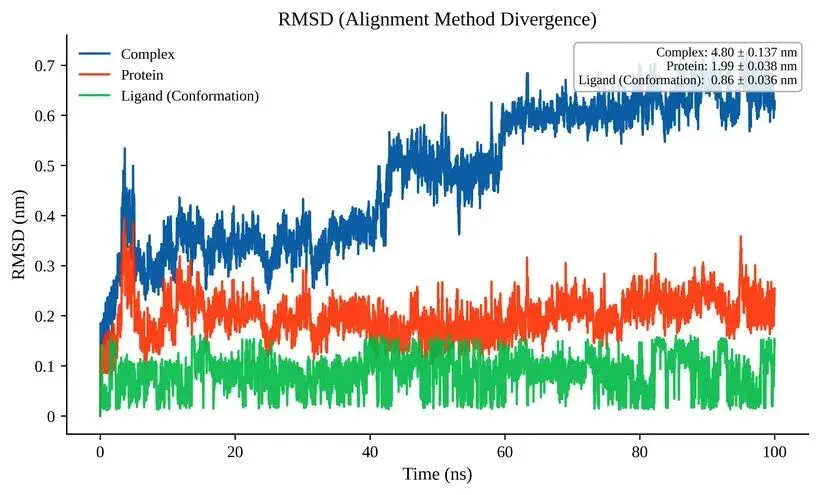
以初始结构为参考的 RMSD(rmsd_paper)。上:复合物(全部重原子叠合);中:蛋白 Cα;下:配体内部构象(仅配体自身叠合)。
蛋白 Cα的 RMSD 在 3.6 ns 达到峰值 3.95 Å,随后回落并在 1.0–3.6 Å之间波动,全轨迹均值 1.99 ±0.38 Å,37.5–100 ns 均值 2.00 Å,末帧 2.54 Å。对 45 个残基的单结构域而言,2 Å属于“折叠保持、环区小幅调整”的量级,核心 β-片层没有发生断裂或重排(见第 6 节 DSSP)。
复合物曲线的形态必须结合配体事件解读:前 40 ns 均值 3.34 Å,45 ns 后升至 5.0–6.7 Å,全轨迹均值 4.80 Å,37.5–100 ns 为 5.69 Å(最大 7.24 Å)。配体内部构象 RMSD 均值 0.86 ±0.36 Å(最大 1.62 Å),说明“复合物 RMSD 升高” 主要来自配体相对蛋白的位移,而不是配体自身变形或蛋白骨架失稳。
2.2 分项 RMSD 与二维分布(rmsd、rmsd_2d)
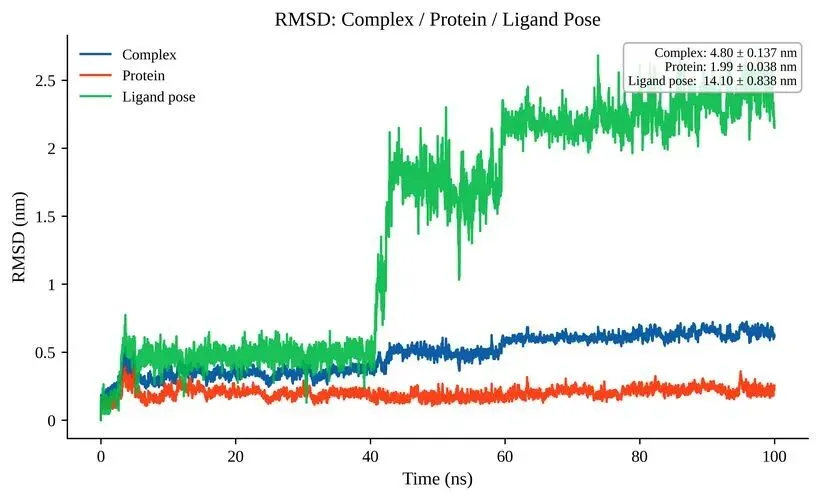 | 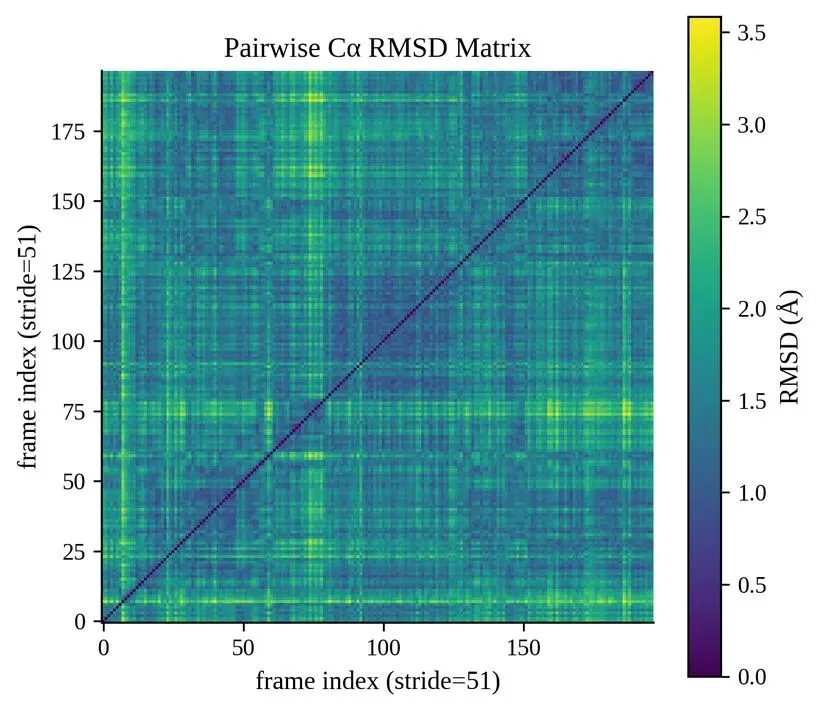 |
左:分项 RMSD(rmsd,蛋白、配体、复合物);右:RMSD 的二维密度分布(rmsd_2d,横轴时间、纵轴 RMSD,颜色为概率密度)。
分项曲线与rmsd_paper一致:蛋白约 2.0 Å且平稳;配体(受体叠合口径)由 0 升至 4–6 Å(0–40 ns),45 ns 后升至 18–27 Å(50 ns 后均值 21.5 Å, 53 ns 短暂回落至 10.3 Å),全轨迹均值 14.1 Å;复合物介于两者之间。二维密度图把这一过程表现为“低位窄带(0–45 ns)+ 高位宽带(45–100 ns)”两段,两段之间没有连续过渡带,说明口袋迁出是一次相对快速的事件,而不是逐渐滑出。
2.3 累积平均与自相关
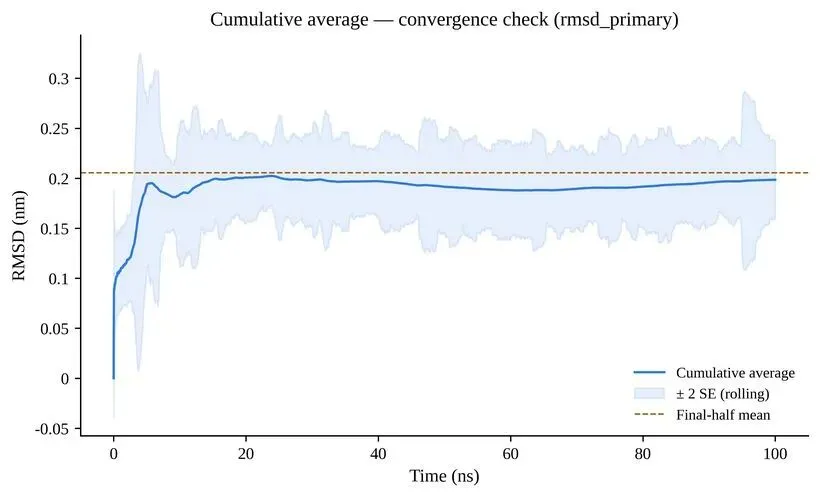 | 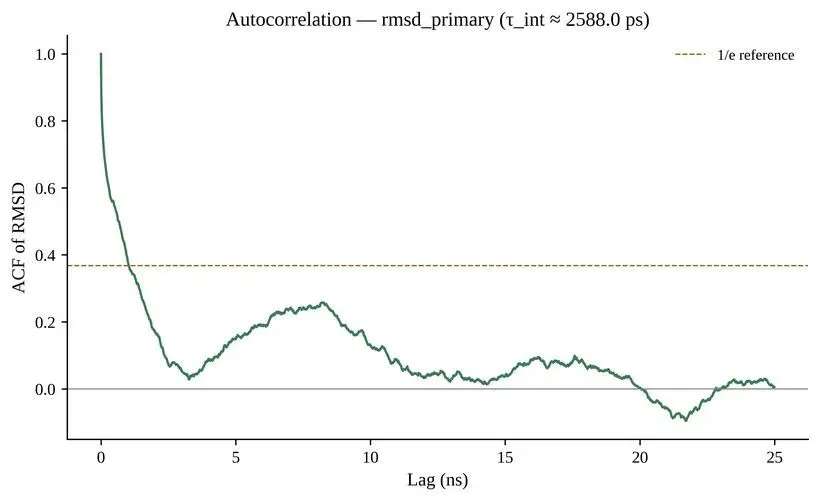 |
左:RMSD 的累积平均(rmsd_primary_cumulative_average);右:RMSD 的自相关函数(rmsd_primary_autocorrelation)。
蛋白 Cα的累积平均在 25 ns 时已达 2.01 Å,50 ns 与 75 ns 分别为 1.91 与 1.91 Å,末端 1.99 Å,即均值在 25 ns 后基本不再漂移——这是“采样已覆盖主要构象涨落”的直接证据。复合物的累积平均则持续上升(25/50/75 ns 为 3.24/3.62/4.28 Å,末端 4.80 Å),因为配体迁移事件把均值不断拉高,说明复合物层面的统计**未收敛**,不宜用后段均值代表平衡态。
自相关函数给出相同的结论:蛋白 Cα的 RMSD 自相关在 lag ≈20 ns 首次过零(1 ns 时已降至 0.38),对应约 20 ns 的关联时间;复合物的自相关直到 lag ≈34.7 ns 才过零(1 ns 时仍为 0.91),反映了配体迁移造成的长时记忆。因此,若只做 100 ns 单轨迹,蛋白层面的平均值可用,配体/复合物层面的平均值不可用。
2.4 小结
蛋白骨架稳定:CαRMSD 2.0 Å,核心区无解折叠。
复合物 RMSD 的升高由配体迁移贡献,不能作为蛋白失稳的证据。
蛋白统计量在 25 ns 收敛;复合物统计量在 100 ns 内未收敛。
3 残基柔性:RMSF 与 B 因子
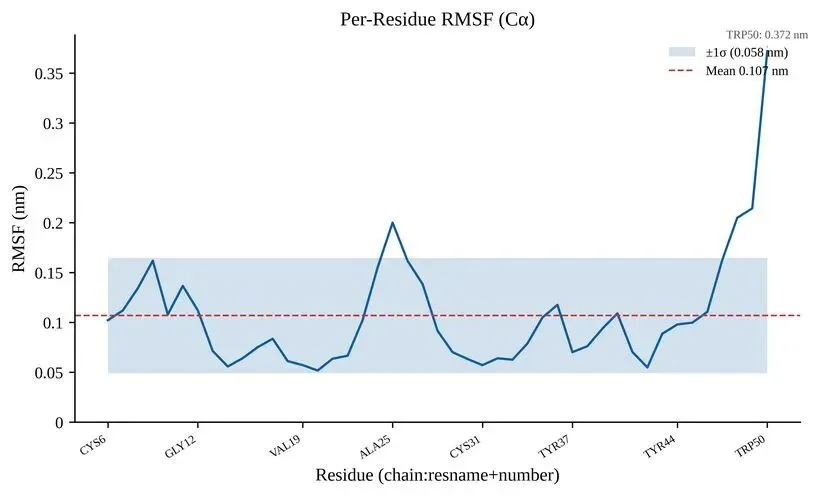 | 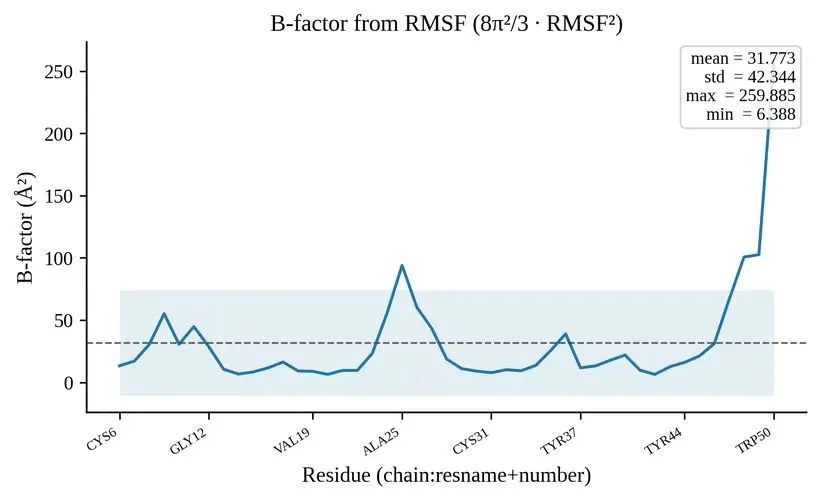 |
左:逐残基 C α 均方根涨落(rmsf);右:由轨迹换算的 B 因子(b_factor, B = 8 π 2 ⟨ Δ r 2 ⟩/3)。两图应呈严格单调关系。
全残基 RMSF 均值为 1.07 Å、中位数 0.94 Å,最大 3.72 Å。分布呈“两端高、中间低”的单峰形态:
最高:C 端残基 50(3.72 Å),其后依次为 49(2.14 Å)、48(2.05 Å)、 25(2.00 Å)、47(1.63 Å)、9(1.62 Å)。C 端 48–50 是游离末端,没有二级结构约束,涨落最大是预期行为;残基 25 位于环区,是结构中最灵活的内部片段。
最低:Cys20(0.52 Å)、Cys42(0.55 Å)、Cys14(0.56 Å)、 Cys31(0.57 Å)。这四个残基正是 EGF 结构域二硫键(C6–C20、C14–C31、 C33–C42)的参与者,共价交联把局部涨落压到 0.55 Å左右,是“刚性核心” 的直接证据。
B 因子图与 RMSF 图完全同构(同一数据换单位),可用于与晶体学 B 因子做半定量比较:本轨迹 B 因子的中位数为 16.3 Å2(均值 31.8、最大 259.9 Å2,最大值出现在 C 端 Trp50)。核心残基的这一量级与高分辨率 EGF 结构晶体相当(约 15–30 Å2),末端残基则显著更高——差异来自溶液中的末端自由度,而非结构差异。
需要强调:RMSF 是时间平均量,包含配体离开口袋前后两种状态。由于配体在 45–60 ns 离开原生口袋,口袋一侧的残基在前后两段经历不同环境,其 RMSF 被“平均”抬高;若只关心初始口袋的柔性,应仅用 0–40 ns 片段重算,本报告未做该拆分,解读时需注意。
4 配体结合、口袋迁出与表面再吸附
本体系的核心事件是木犀草素在 45–60 ns 之间离开 EGF 的初始结合口袋,并在蛋白表面另一区域重新吸附。本节用五组独立指标(位姿 RMSD、质心距离、相对质心漂移、最近重原子距离与配体内部构象)交叉验证该事件,并区分“配体变形”“离开口袋”与“完全解离”。
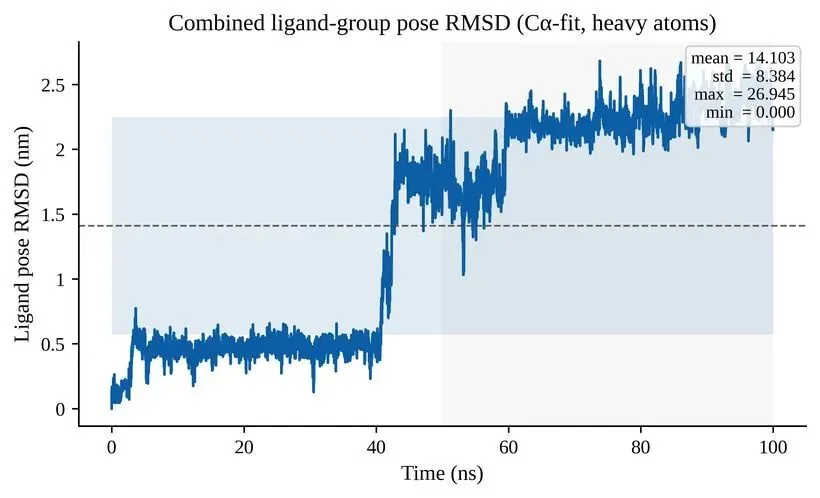 | 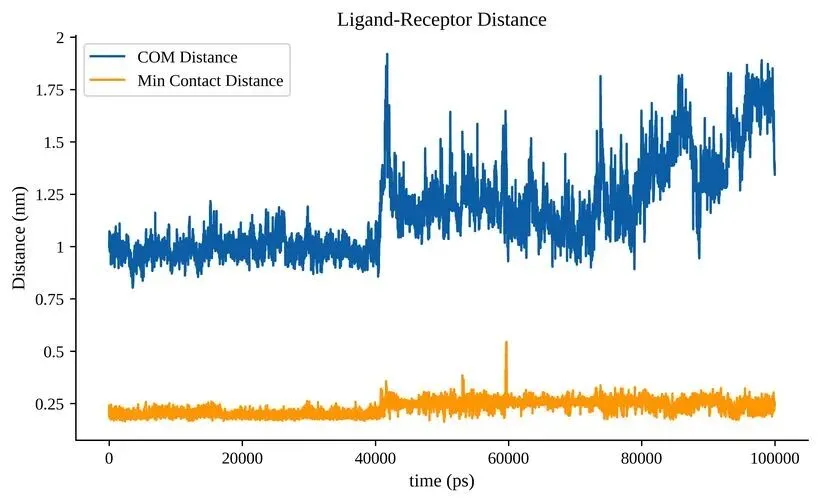 |
左:受体叠合后的配体位姿 RMSD(ligand_pose_rmsd);右:配体与蛋白的质心距离(ligand_distance)。两条曲线在 45 ns 附近同时抬升。
位姿 RMSD在前 40 ns 为 4.5 Å(0–7.7 Å;0 ns 定义为零,5 ns 已达 6.0 Å),说明配体在结合位点内经历了明显的取向重排;45 ns 后升至 18.3 Å,50 ns 后均值 21.5 Å,最大 26.9 Å(98.0 ns),53 ns 附近短暂回落至 10.3 Å,全轨迹均值 14.1 Å。
质心距离从 10.15 Å起步,结合段最低 8.03 Å,40 ns 后开始上升,峰值 19.20 Å(41.8 ns),全轨迹均值 11.68 Å,末帧 13.43 Å;50 ns 后在 8.9–18.9 Å之间波动。该曲线的绝对变化(约 3 Å)远小于位姿 RMSD 的变化,说明配体是沿蛋白表面迁移,而不是被推到远离蛋白的溶剂中。
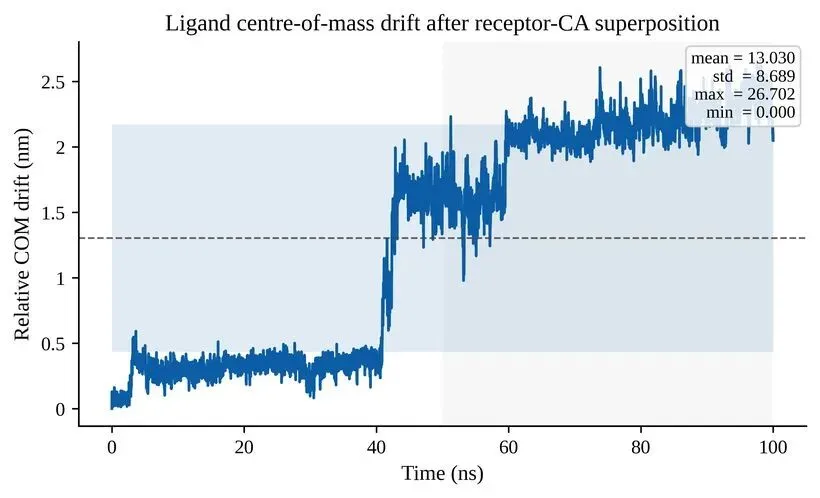 | 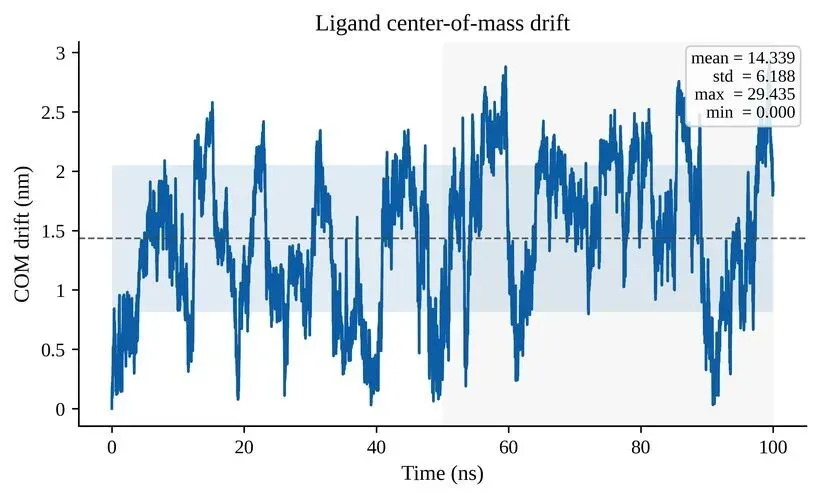 |
左:配体–受体相对质心漂移(relative_com_drift);右:体系质心表观漂移(com_drift)。
相对质心漂移定义为配体质心相对初始位置的矢量长度变化,初值为 0;40 ns 为 3.37 Å,45 ns 跃至 17.01 Å,最大 26.70 Å(98.0 ns),末值 20.49 Å。分量为: x由−9.39增至+3.43Å,y由−3.80增至+7.91Å,z由+0.58变为−10.30Å——配体主要沿z轴离开,并伴随x方向的反转,是一次 “滑出 + 绕行”而非单向拉出。
体系质心漂移的全轨迹漂移量为 14.34 Å(最大 29.43 Å),但这个数字包含溶剂与离子的重排,不能读作蛋白漂移。作为对照,受体质心在拟合坐标系中始终位于 (29.77, 42.77, 24.73)Å附近,三个分量的标准差仅 0.10–0.11 Å,说明轨迹拟合本身是正确的;com_drift只宜作为“体系是否整体漂移”的监控量。
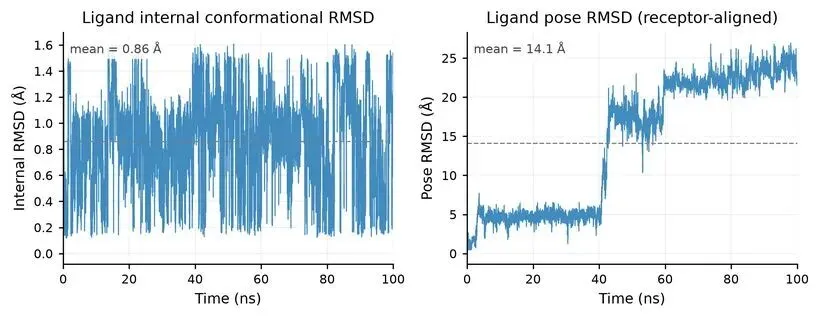
配体 RMSD 汇总(ligand_rmsd,含配体内部与位姿两个口径)。内部曲线全程 ≤ 1.7Å 而位姿曲线在 45 ns 抬升,二者的分离即为“整体位移而非变形”的直接证据。
内部构象 RMSD全程 0.86 ±0.36 Å,最大 1.62 Å:木犀草素的三环骨架(苯并吡喃酮 + 邻二酚)在 100 ns 内保持平面,没有发生环翻转或羟基重排。因此口袋迁出不是“构象崩解导致脱靶”,而是完整的配体整体离开初始口袋。
配体有没有离开蛋白?没有。全轨迹 10 001 帧中,配体–蛋白最近重原子距离只有 59.62–59.70 ns 的 6 帧超过 4.5 Å;50 ns 之后最近距离稳定在 2.4–2.6 Å,末帧 2.42 Å,接触原子对 96 个、接触残基 7 个。配体 SASA 在 59.5 ns 达到峰值 398 Å2,随后回落到末帧 187 Å2,仍明显低于完全暴露的游离配体。因此本报告把这一事件表述为“离开原生口袋 + 表面迁移”,而不是“从蛋白解离进入溶剂”。
把四条曲线放在一起,可把 100 ns 划为四段:
0–10 ns:位姿快速调整(0 →6.0 Å),质心距离 10.2 →9.2 Å,配体仍在口袋内,属结合态重排。
10–45 ns:位姿稳定在 4–5 Å,质心距离 9–12 Å,氢键维持,是可用于初始结合模式分析的窗口。
45–60 ns:位姿 >18 Å,配体离开原生口袋;50 ns 后质心距离 11–15 Å,59.5 ns 配体暴露度达到峰值(SASA 398 Å2,最近距离短暂升至 5.45 Å)。
60–100 ns:位姿 20–27 Å,质心距离 10.5–15.1 Å,最近距离回到 2.4–2.6 Å,接触原子对 87–131,配体已在新表面位点重新吸附;此后的 “结合”类指标描述的是这个新位点,而不是初始口袋。
5 氢键、接触与盐桥
5.1 蛋白–配体氢键
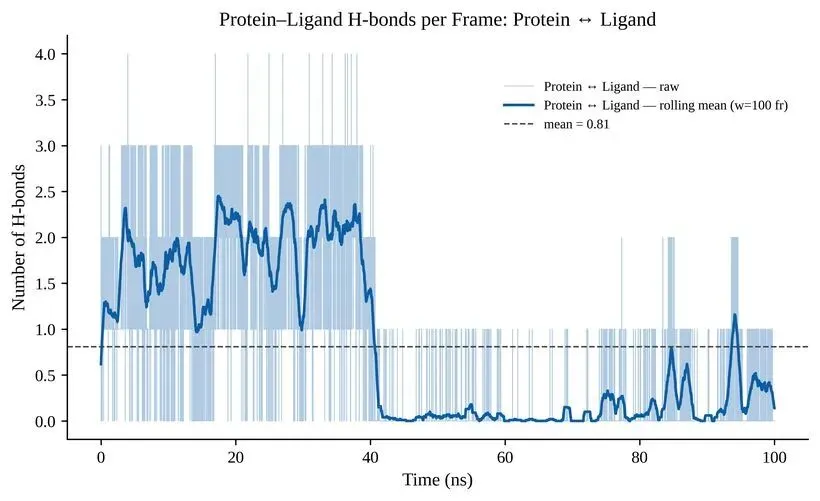 | 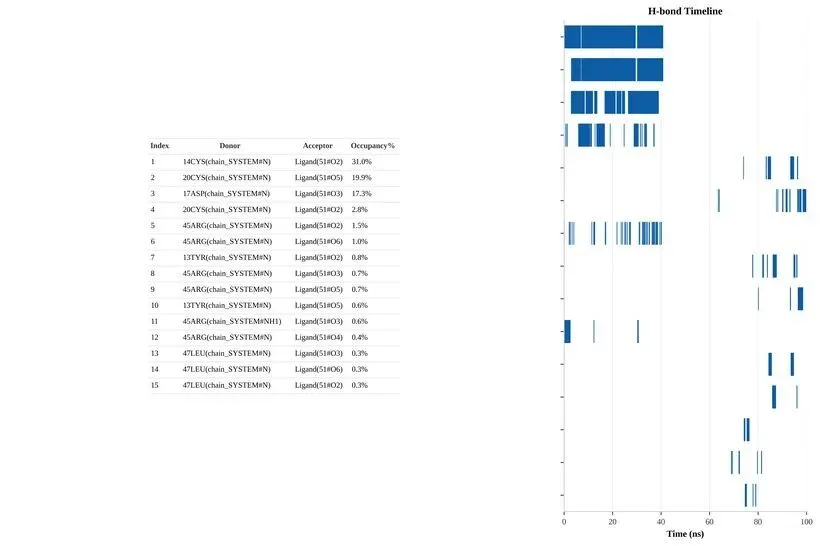 |
左:每帧蛋白–配体氢键数(hbond);右:各氢键对的占据时间线(hbond_timeline)。
全轨迹氢键数为 0.81 ±1.02 条/帧,45.7% 的帧至少存在 1 条氢键。曲线呈明显两段: 0–40 ns 均值 1.80 条/帧(0–45 ns 为 1.63),45 ns 后迅速跌至 0.15 条/帧,多数帧为 0。hbond_timeline显示,参与相互作用的氢键对在 45 ns 附近同时熄灭,与位姿 RMSD 的抬升完全同步——这不是“氢键逐渐变弱”,而是“配体离开原生口袋导致所有氢键同时失去”。
5.2 氢键寿命与残基占据
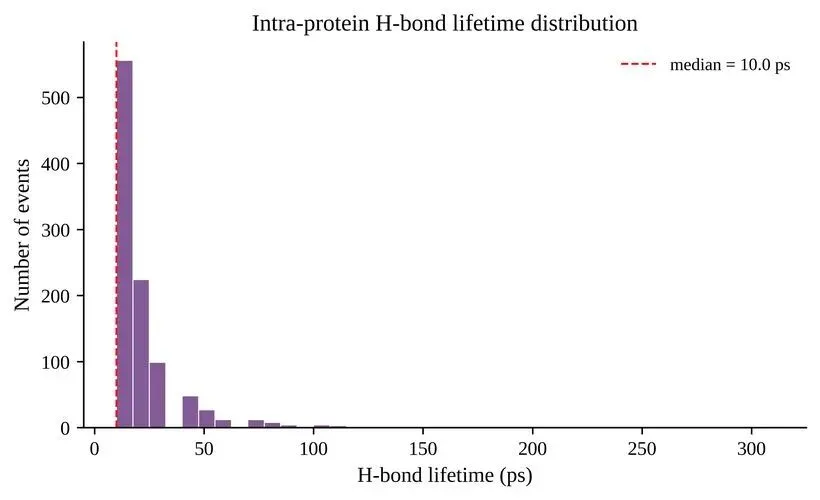 | 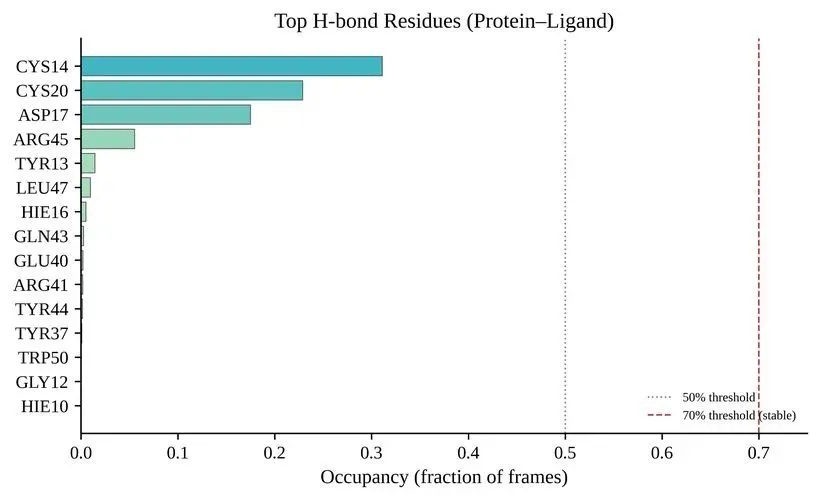 |
左:氢键寿命分布(hbond_lifetime);右:按残基统计的氢键占据率(hbond_residue_occupancy)。
共识别 1 005 个氢键事件,寿命均值 21 ps、中位数 10 ps、90 分位 40 ps、最长 310 ps。分布为典型的长尾:绝大多数氢键只维持一两帧(10–20 ps),只有极少数能跨越 0.3 ns。这说明即使在前 45 ns 的“结合态”,蛋白–配体氢键也是瞬态的,结合主要由形状互补与疏水堆积维持,而不是由稳定的定向氢键锁定。
按残基统计的占据率依次为 Cys14(0.311)、Cys20(0.229)、Asp17(0.175)、 Arg45(0.055)、Tyr13(0.014)。占据率高度集中在前三个残基,说明氢键作用局限在一个小区域(Cys14–Cys20–Asp17 一带),其余口袋残基几乎不提供氢键。
5.3 氢键几何
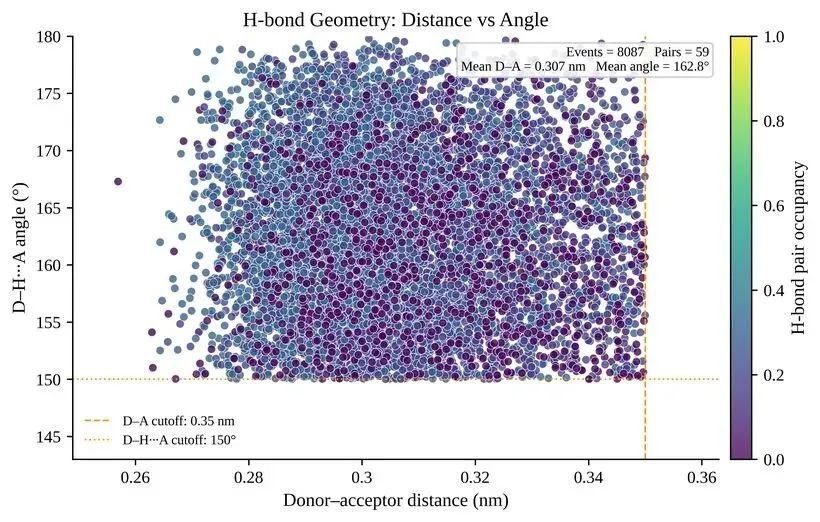
全部氢键事件的供体–受体距离与 D–H⋯A 角分布(hbond_geometry,数据源hbond_details.csv,8 087 条记录)。两项判据均与阈值保持明显间距,说明"有氢键"的判定不依赖临界值。
8 087 条满足判据的氢键记录中,供体–受体距离均值 3.07 ±0.18 Å(范围 2.57–3.50 Å),D–H⋯A 夹角均值 162.8 ±7.3∘(范围 150.0–179.8∘)。距离中位数距 3.5 Å截断仍有 0.4 Å余量、角度几乎不贴 150∘下限,说明本体系统计到的氢键是"真氢键",不是被阈值凑出来的边缘接触。几何分布集中在强氢键区(距离 <3.2 Å、角度 >155∘),与木犀草素邻二酚羟基的定向能力一致。
5.4 接触、相互作用指纹与接触图
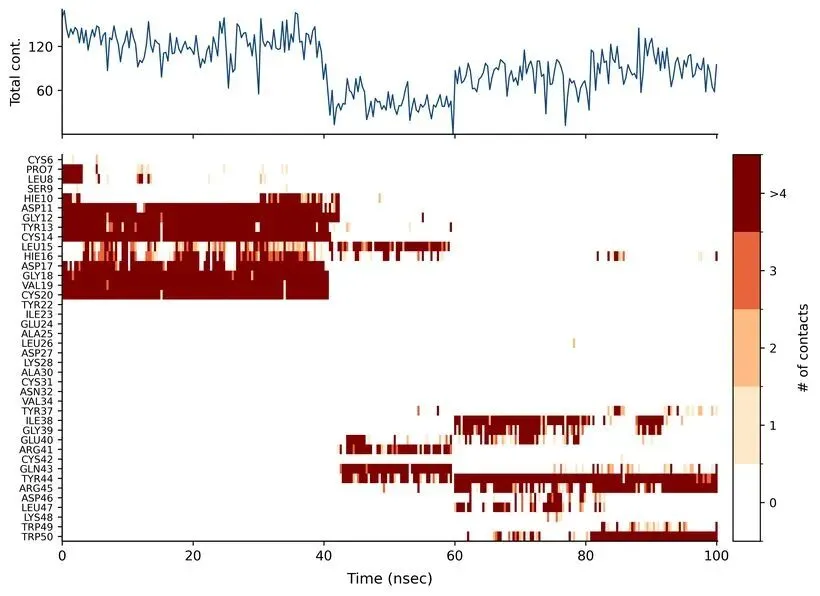 | 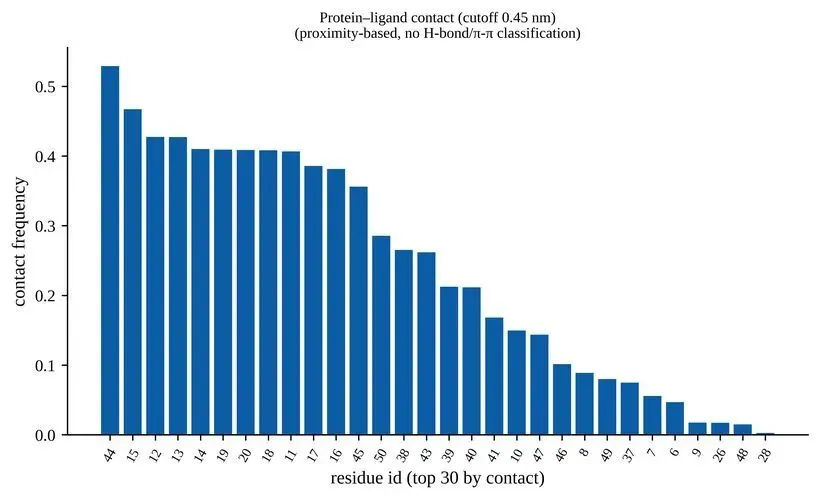 |
左:蛋白–配体重原子接触数(pl_contacts);右:相互作用指纹(plif,按残基统计的接触频率)。
接触原子对从 0 ns 的 159 降至 100 ns 的 96(全轨迹均值 92.8),接触残基数由 11 降至 7,转折同样发生在 45 ns 附近。PLIF 给出初始口袋的主要接触残基:Tyr44(0.53)、 Leu15(0.47)、Gly12(0.43)、Tyr13(0.43)、Cys14(0.41)、Val19(0.41)、 Cys20(0.41)、Gly18(0.41),其后为 Asp11(0.41)与 Asp17(0.39)。前八位全部落在 11–20 与 44 两个片段,构成一个由 Gly12/Leu15/Gly18/Val19 与 Cys14/Cys20 围成的浅槽,Tyr44 位于槽口、接触频率最高,但其芳香侧链主要提供疏水/π堆积,并未形成持续氢键。
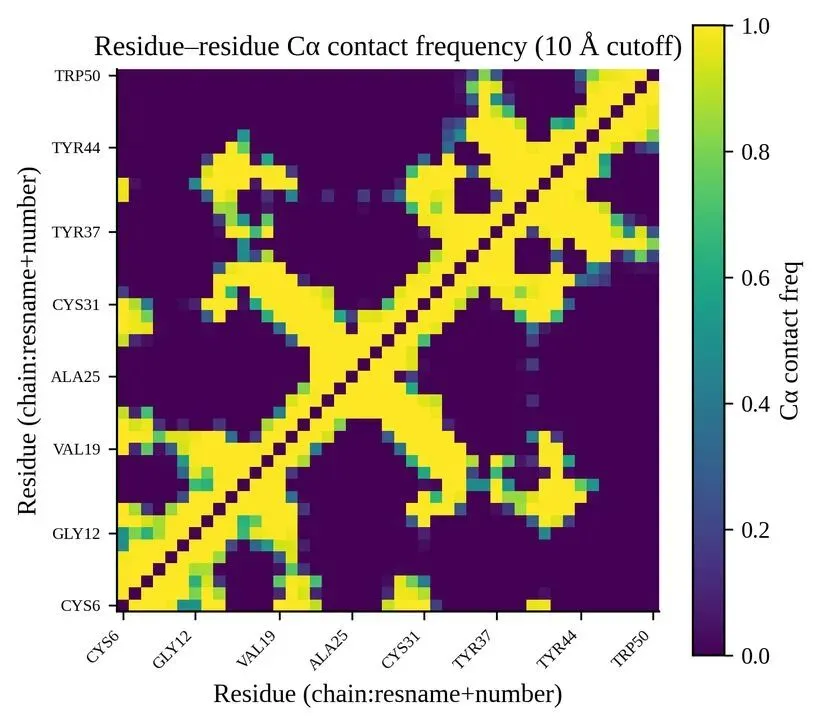
蛋白内部残基接触图(contact_map)。注意这是蛋白内接触矩阵,不是配体–蛋白接触图;其高频对角带对应二硫键与二级结构邻近关系。
contact_map与contact_map_top_pairs描述的是蛋白自身残基间的接触,占据率最高的对(Cys6–Pro7、Cys6–Leu8、Cys6–Tyr13,均为 100%)反映的是 Cys6 参与的二硫键及其邻近骨架的刚性,可作为结构完整性的内部参照,不能当作配体结合证据。
5.5 盐桥
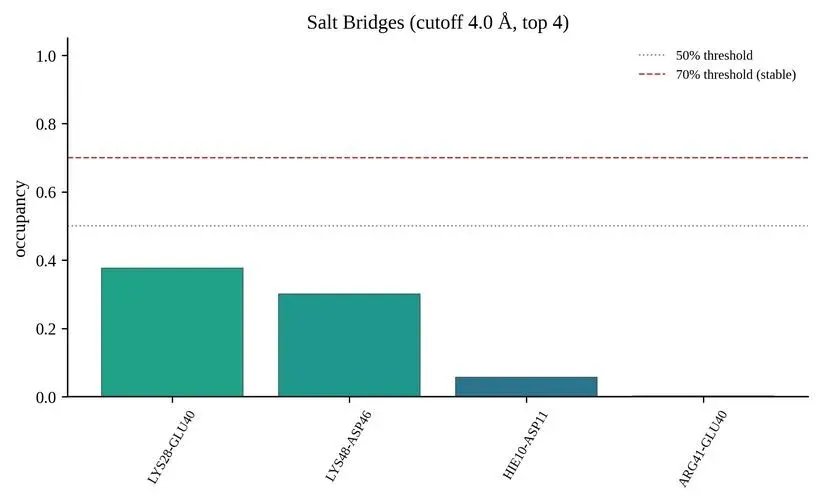 | 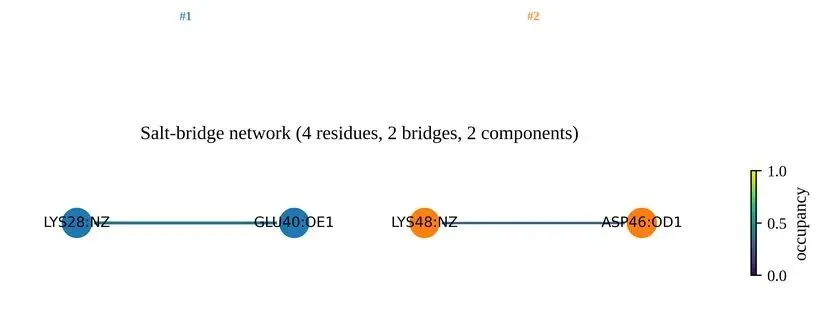 |
左:蛋白内盐桥占据(saltbridge);右:盐桥网络(saltbridge_network)。汇总表的残基编号列为空,具体残基对由明细表解析。
盐桥分析只识别到蛋白内盐桥:Lys–Glu 占据 37.7%、Lys–Asp 30.1%、His–Asp 5.7%。木犀草素为中性黄酮,本身不带可离子化基团,因此不参与盐桥,这与化学结构一致。汇总表saltbridge.csv的 pos_resid/neg_resid两列为空,但明细表saltbridge_details.csv(1 229 条)保留了完整标签,据此可定位到具体的残基对:Lys28–Glu40 占 629 条、Lys48–Asp46 占 501 条、His10–Asp11 占 95 条,三者合计覆盖 99.6% 的盐桥事件。前两对分别位于 EGF 结构域的两端环区,是维持两端相对取向的主要静电锚点;由于它们都远离配体结合位点,本轨迹中配体离开口袋与蛋白内盐桥网络的变化没有直接耦合关系。
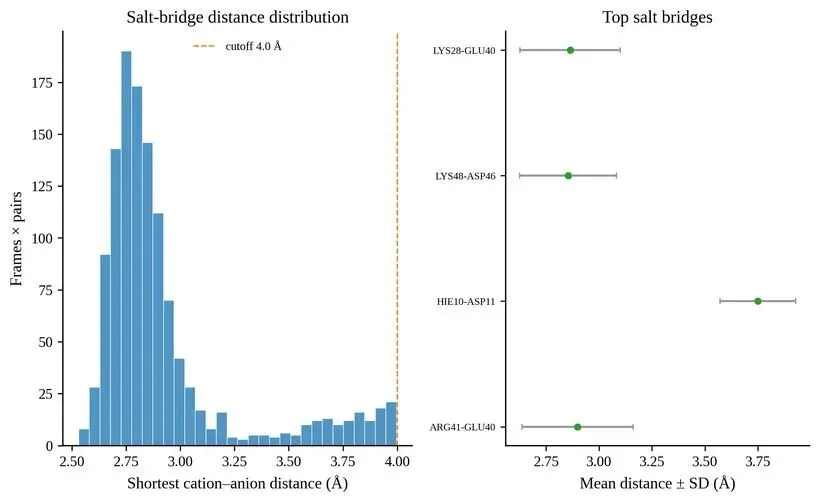
蛋白内盐桥的电荷中心距离分布(saltbridge_geometry,数据源saltbridge_details.csv):均值 2.93 Å,范围 2.53–4.00 Å,全部落在 4 Å判据以内,说明识别到的盐桥均为紧凑的离子对。
5.6 水桥
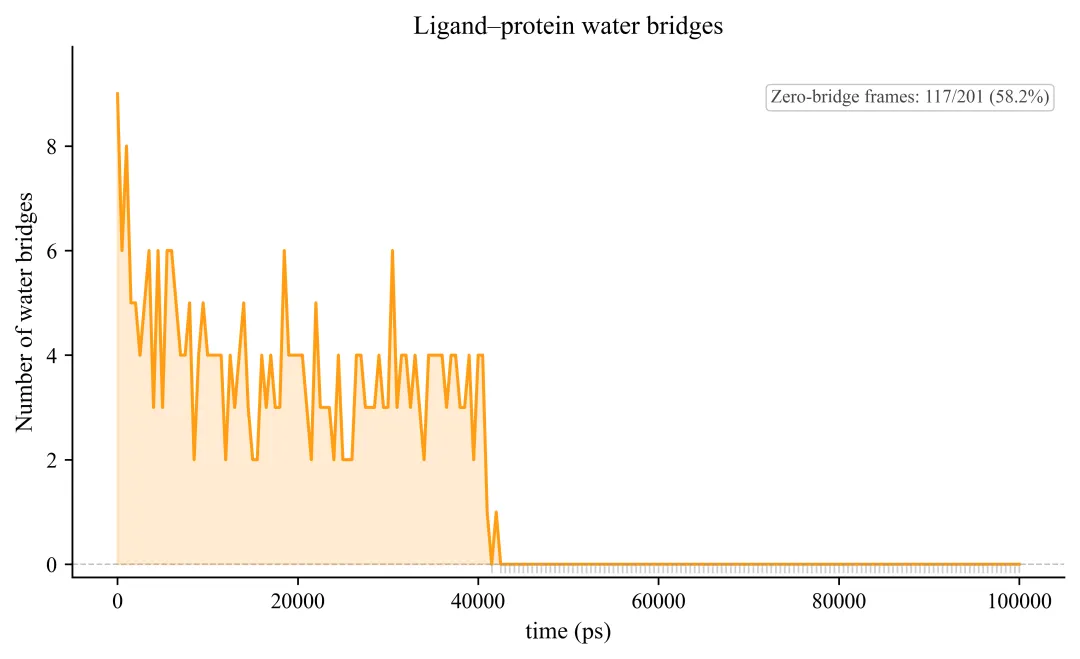
重算后的 water_bridge.csv 覆盖 201 个均匀抽采样帧,平均水桥数 1.58 条/帧,最大 9 条,零桥帧占 58.2%;共识别 37 个供体–受体对和 317 条桥边。水桥为间歇性界面作用,而非持续锚定。旧版 25 帧全 0 是配体极性原子名和受体抽样选择造成的,本版已修复。
6 整体构象、二级结构与口袋
6.1 回旋半径与溶剂可及表面
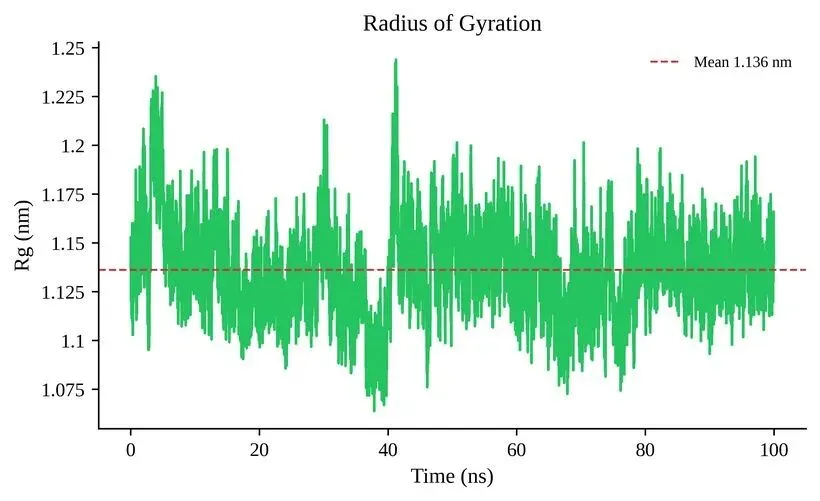 | 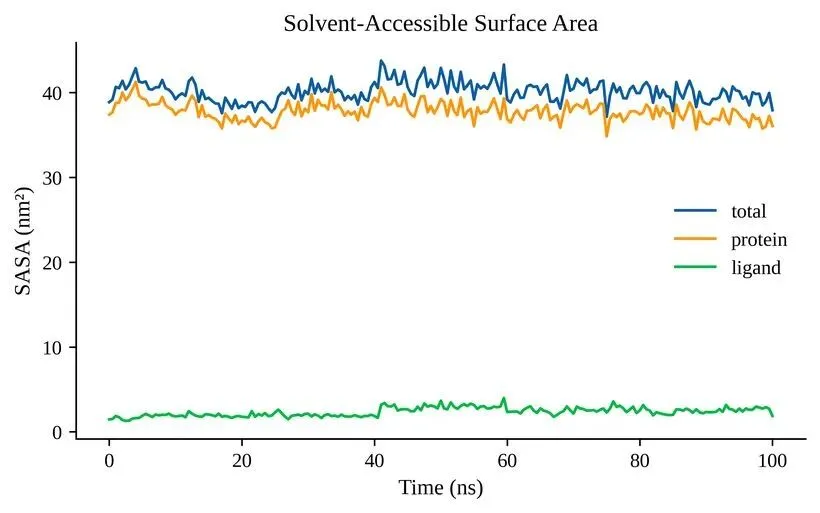 |
左:回旋半径(rg);右:SASA(sasa,蛋白与配体分别统计)。
Rg为 11.36 ±0.23 Å,范围 10.64–12.44 Å,首帧 11.41 Å,末帧 11.48 Å。曲线在 0–2 ns 先升至 11.88 Å,随后回到 11.3–11.5 Å并长期稳定;41 ns 附近出现一次 12.44 Å的瞬时膨胀,很快回落。对 45 残基的单结构域,Rg标准差仅 0.23 Å 说明整体紧密度被牢牢维持。
SASA 按 0.5 ns 抽样(201 帧):蛋白 3 780 ±107 Å2,总 SASA 均值 4 015 ±120 Å2。配体 SASA 在 0–40 ns 均值为 188 Å2(首帧 146), 50 ns 后均值 263 Å2,59.5 ns 达峰值 398 Å2,末帧回落到 187 Å2,全轨迹均值 234.5 ±51.0 Å2。这一变化是口袋迁出的直接读数:埋入口袋时暴露面积最小;离开口袋、到达最暴露位置时接近游离配体的完全暴露值;随后在新表面位点重新埋藏。末帧 SASA 仍远低于完全暴露值,说明配体并未进入体相溶剂。
SASA 另有一套去除离群帧的清洗版本(sasa_clean,同样 201 帧):蛋白与配体两列与原版逐帧相同,但total列口径不同(均值 4 016.7 对原始 4 014.9 Å2,逐帧最大差 359 Å2),因此两版总 SASA 不能逐帧互证;正文只引用原始sasa.csv的蛋白/配体两列。
6.2 二级结构
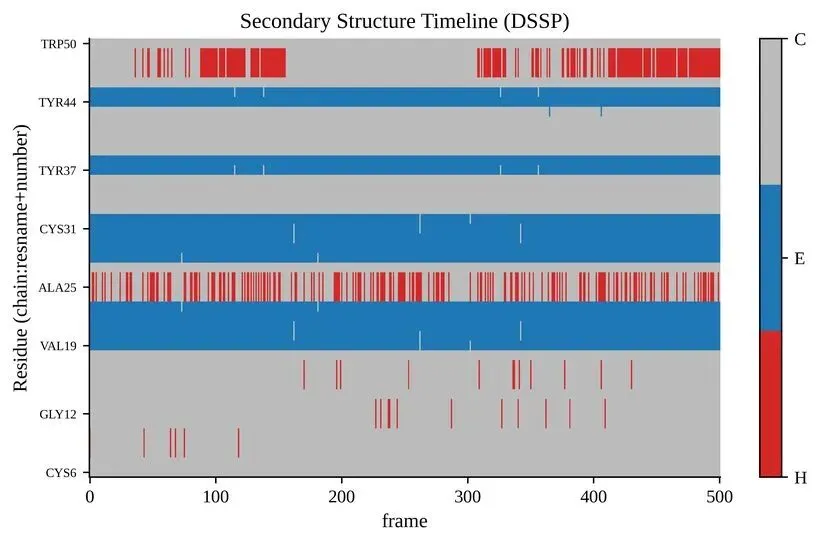 | 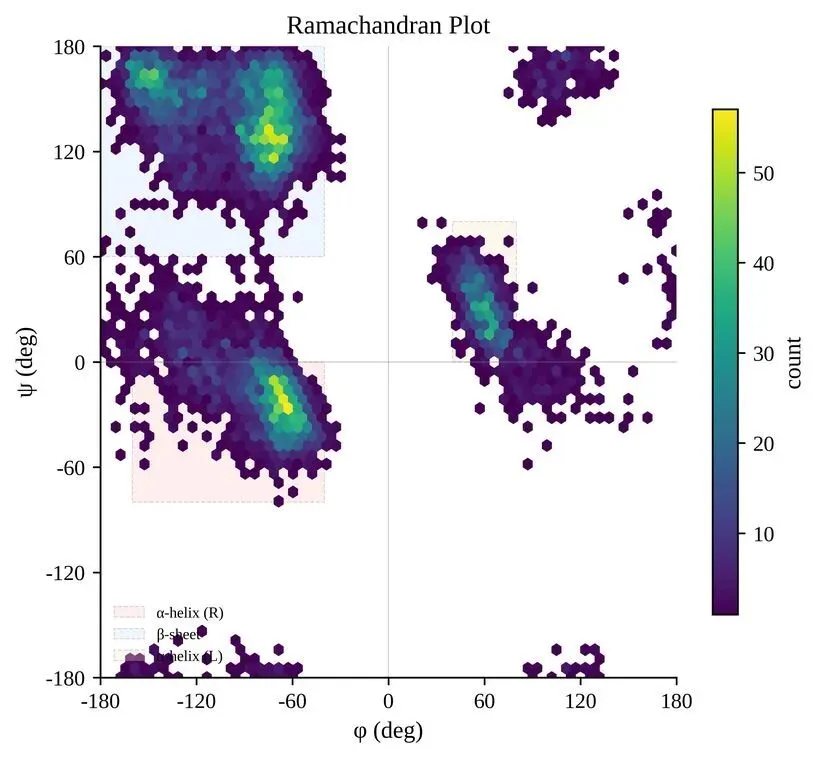 |
左:DSSP 二级结构随时间的演变(dssp);右:Ramachandran 图(ramachandran)。
DSSP 在 501 帧上统计 45 个残基,组成稳定:α-螺旋 5.6%、β-折叠 31.0%、无规卷曲/环 63.4%。这一比例与 EGF 结构域“以 β-发夹为核心、外围多环”的已知折叠一致。逐帧图显示 β带的位置全程不变,没有出现“β→coil”的整段转变,说明核心折叠在 100 ns 内保持。
Ramachandran 统计给出允许区 86.5%、离群 13.5%。离群比例偏高,主要来自 Gly39(100%)、Arg41(97%)与 Gly36(87%)。甘氨酸没有侧链,ϕ/ψ本就分布宽;Arg41 位于 C 端前的环区(RMSF 中该段同样偏高)。因此这些离群点反映的是环区柔性,而不是结构错误;但若用于发表,应说明“离群集中在 36–41 的环区”,避免被误读为模型质量问题。
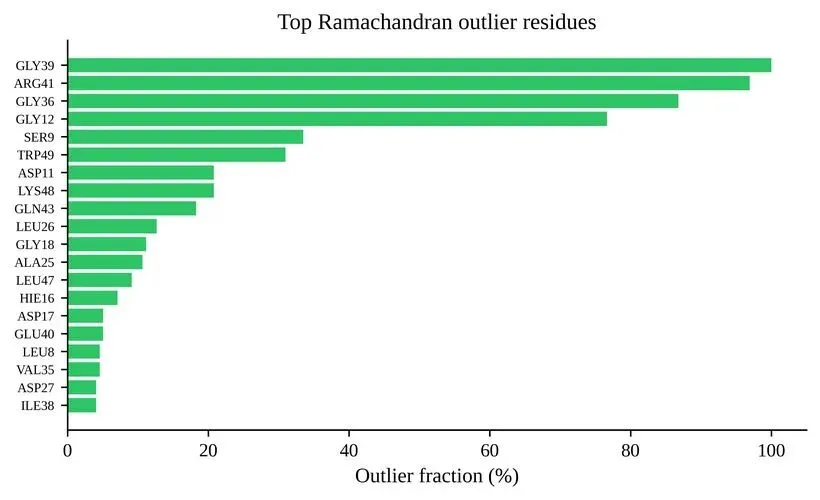
离群残基定位(ramachandran_outliers)。离群集中在 Gly36、Gly39、 Arg41 一带的环区,与 RMSF 高值区重合。
6.3 侧链与骨架二面角
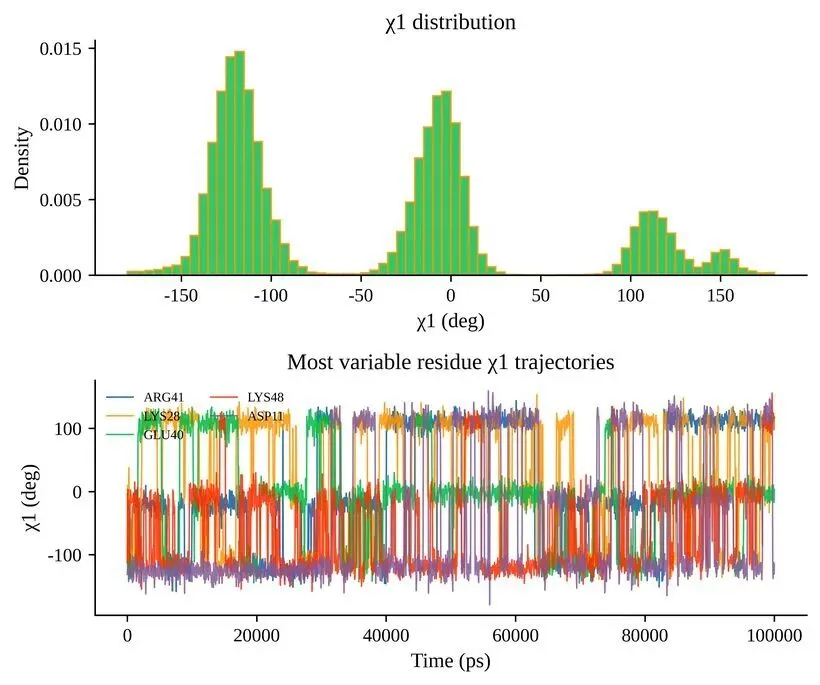 | 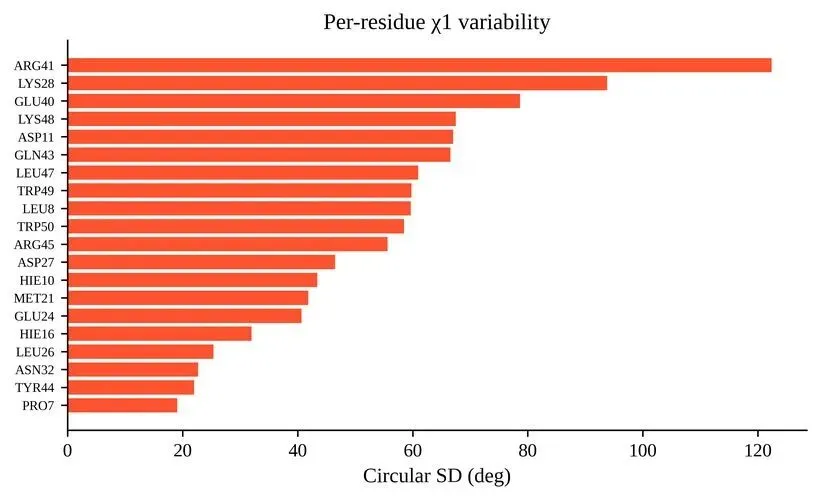 |
左: χ 1 二面角随时间(chi_dihedral);右:逐残基 χ 1 分布(chi1_residues)。
χ1的圆均值为 −80.1∘、圆标准差 85.3∘(线性均值 −41.8 ± 86.9∘)。逐残基图显示,核心区的 Leu15、Tyr13、Tyr22、Tyr37 的 χ1集中在一个势阱内(圆标准差 8–13∘),而表面 Arg41(122∘)、 Lys28(94∘)、Glu40(79∘)、Lys48(67∘)跨越多个势阱;暴露在端部的 Leu8/Leu47 也在约 60∘。侧链的这种“内刚外柔”分布与 RMSF 的残基排序一致。
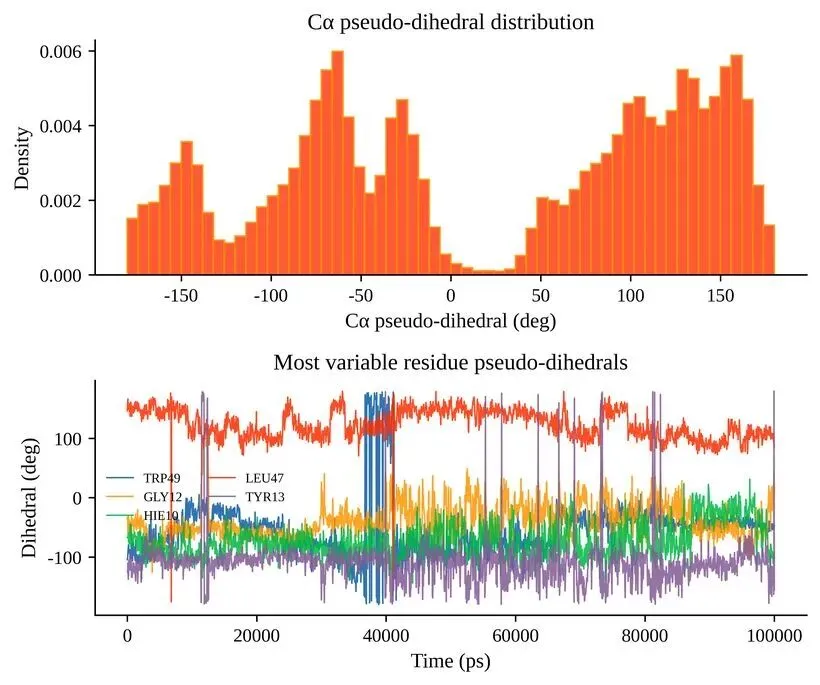 | 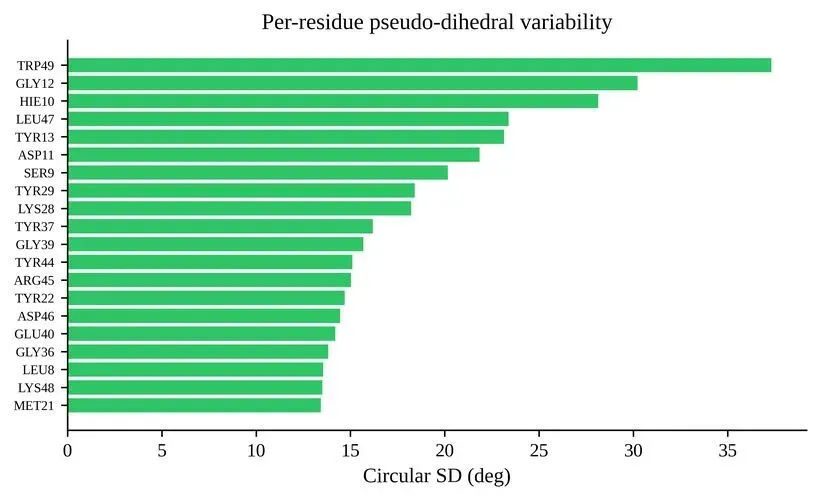 |
左:骨架键角/二面角的整体分布(angle_dihedral);右:逐残基角度离散度(angle_dihedral_residues)。
键角离散度的中位数为 12.8∘,最高的四个残基是 Trp49(37.3∘,结果长度 0.81)、Gly12(30.2∘)、His10(28.1∘)、Leu47(23.4∘)。 Trp49 与 Leu47 属 C 端游离段,Gly12/His10 位于 N 端环区,均与 RMSF 高值区吻合。核心 β区残基的键角离散度普遍低于 15∘,说明主链几何没有被扭曲。
GROMACS 原生 χ1输出(chi_dihedral_gmx,45 帧)。纵轴范围仅 0–0.98∘,与 χ1应有的 −180∘–+180∘分布严重不符,属解析失效,不用于解读;侧链二面角以chi_dihedral与chi1_residues为准。
作为交叉检查,GROMACS 原生版本(chi_dihedral_gmx)只输出 45 帧,数值全部落在 0–0.98∘之间,明显是把某个标量(可能是残基序号或归一化偏差)误当作二面角写入,因此不作为佐证;侧链构象的判断只依赖流水线版本。
6.4 螺旋取向与主惯性轴
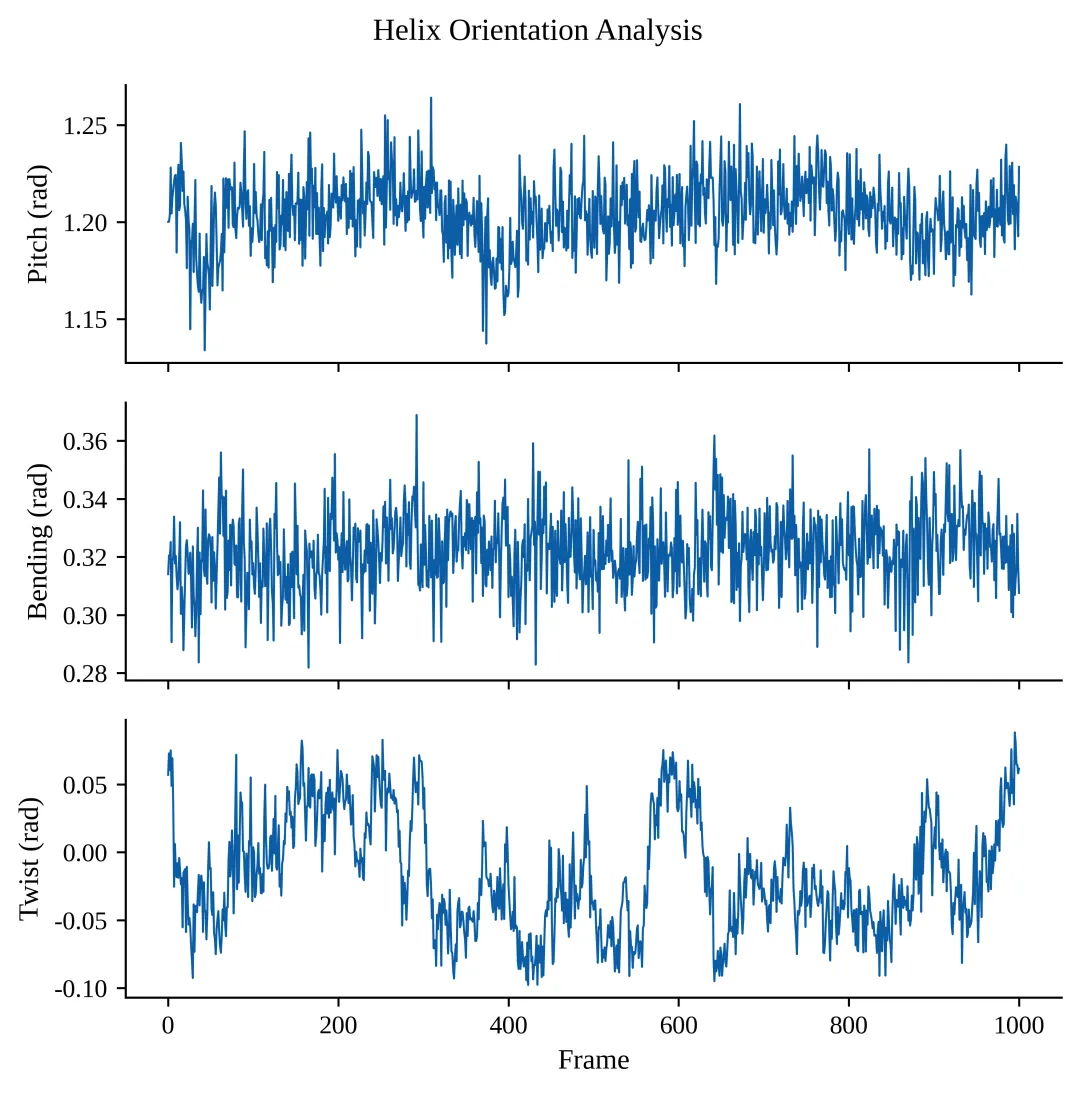
螺旋几何参数(helix_orient,纵轴单位为 rad);GROMACS 原生 helix_orient_gmx 未生成:DSSP 螺旋占比 5.6%,无连续 ≥4 残基螺旋,按规则跳过。
pitch 1.204 ± 0.018 rad(69.0°)、bend 0.322 ± 0.013 rad(18.4°)、twist −0.016 ± 0.042 rad(−0.9°)。三者波动很小,说明该短螺旋在 100 ns 内没有伸展或折断。
gmx helixorient 需要连续至少 4 个残基的螺旋段才能定义局部轴;EGF 的 DSSP 螺旋含量仅 5.6%,当前代码直接跳过并报告不适用,不再输出三分量全 0 的伪曲线。
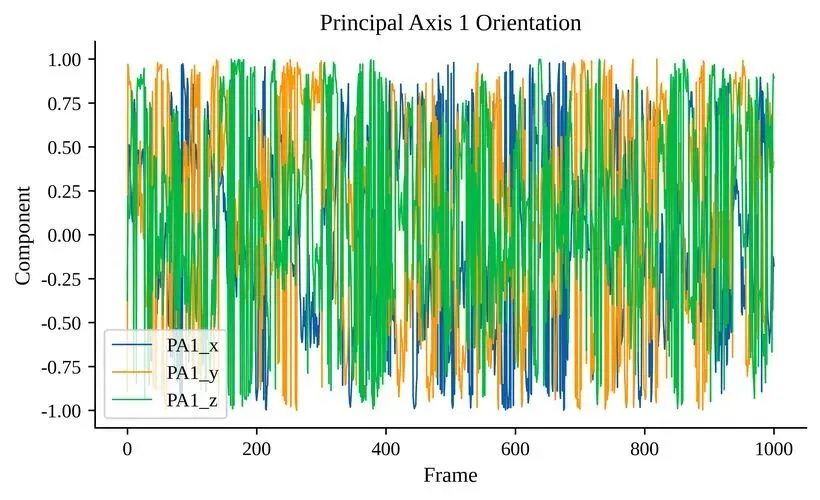
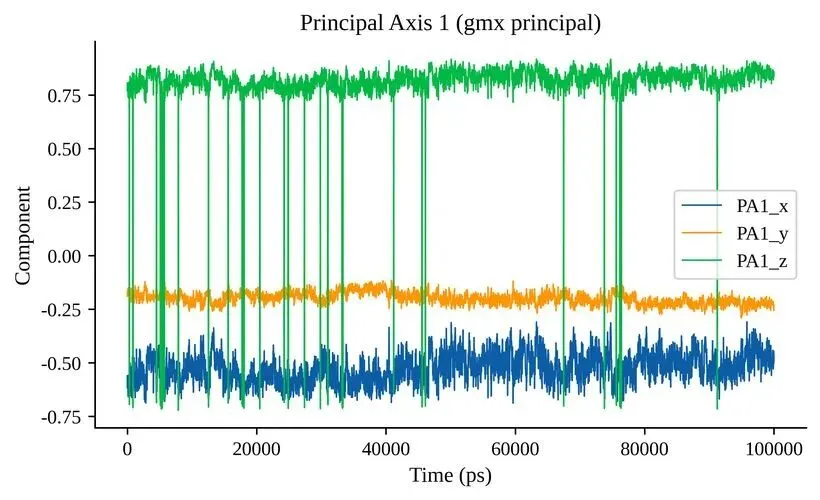
主惯性轴方向(principal_axes;右:principal_axes_gmx)。
三个主惯性轴在 100 ns 内基本固定,结构没有发生整体翻转或大幅重取向。主轴本征值接近时轴序可能交换,方向符号无物理意义,只比较轴是否稳定。
6.5 口袋体积、构象聚类与快照
 |  |
左:口袋体积(pocket_volume);右:构象聚类(clustering)。
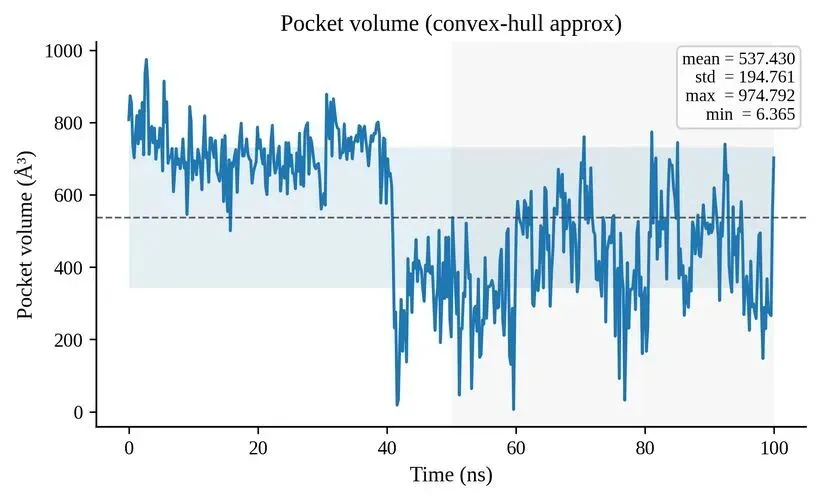
口袋体积均值 537 ±195 Å3:0 ns 为 808 Å3,50 ns 降至 207 Å3,末帧回升至 703 Å3。需要说明:该指标以配体为中心、取 8 Å 内蛋白原子做凸包(convex_hull_8A_around_ligand),因此它度量的是配体所处位置的局部包埋程度,而不是初始口袋本身的塌陷与恢复。50 ns 的低值对应配体迁移途中最暴露的位置(与配体 SASA 峰值同步),末帧回升对应新表面位点的重新包埋;不能据此推断口袋有“记忆”或配体被结构性包埋。
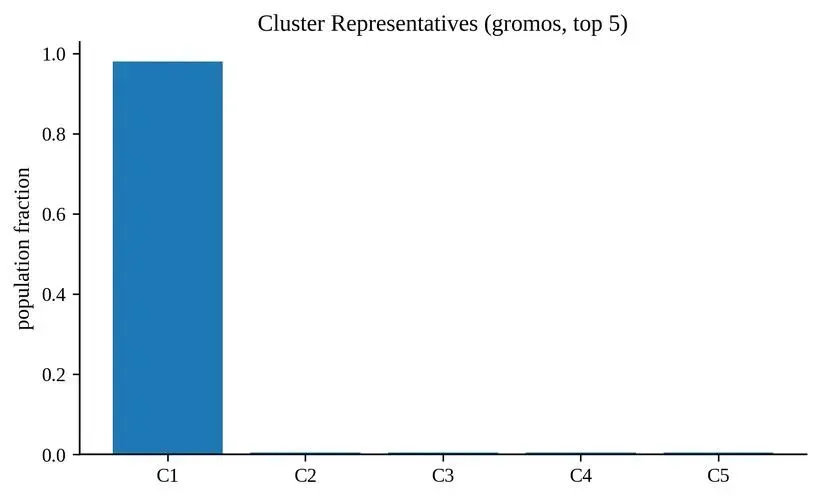
聚类在 197 个抽样帧上得到 5 个簇,其中簇 1 占 193 帧(98.0%),其余各 1 帧。即整条轨迹(除个别离群帧)属于同一构象家族,蛋白没有在多个亚态之间跳转。这与 Rg、RMSD、DSSP 的稳定性结论一致,也说明 100 ns 内采样到的是单一盆地。
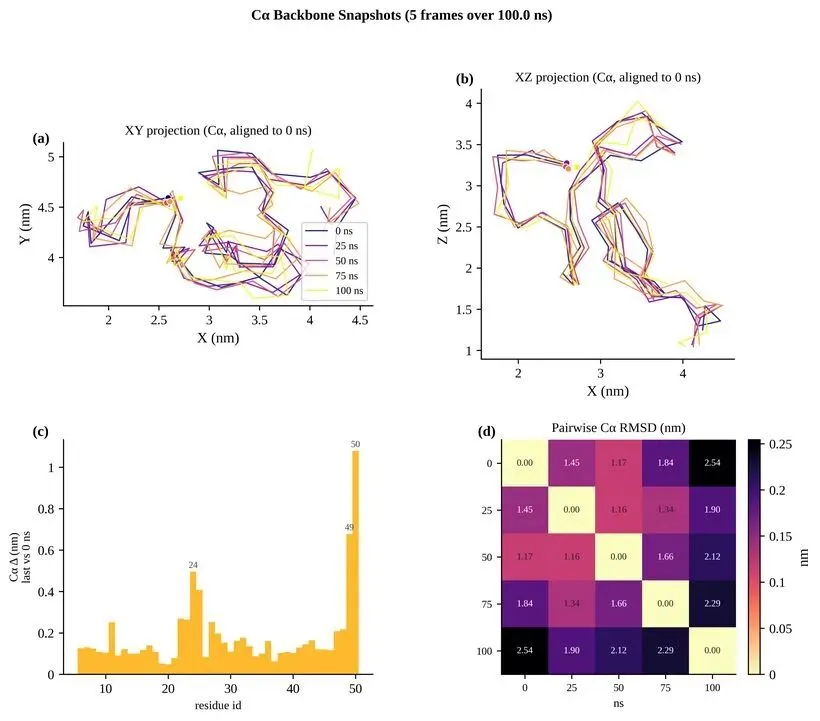
构象快照序列(conformation_snapshots)。
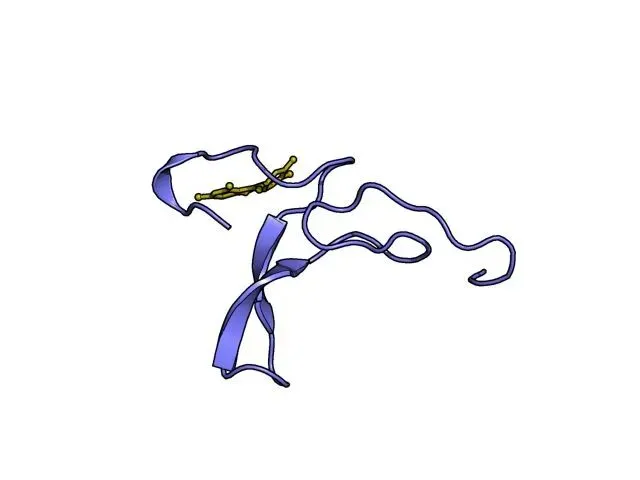 | 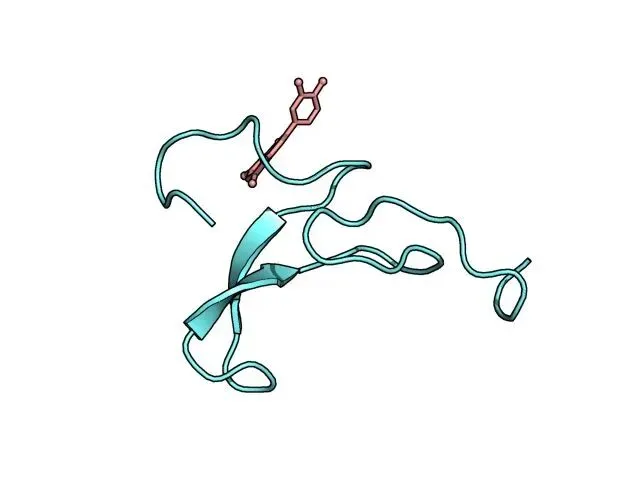 | 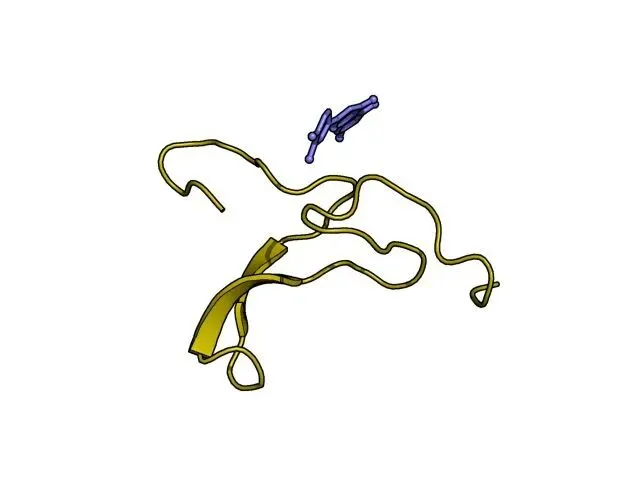 | 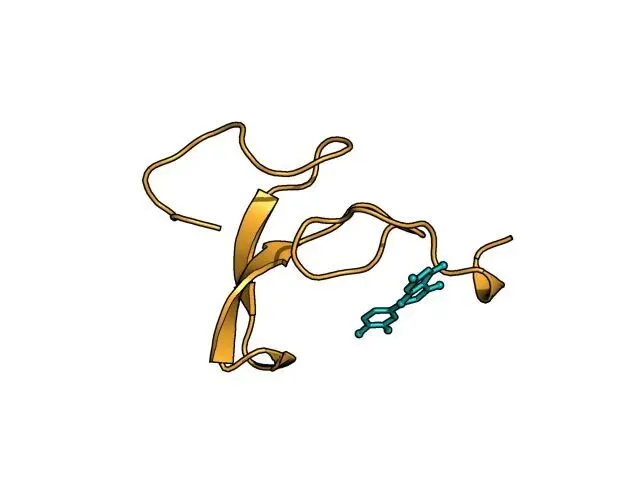 | 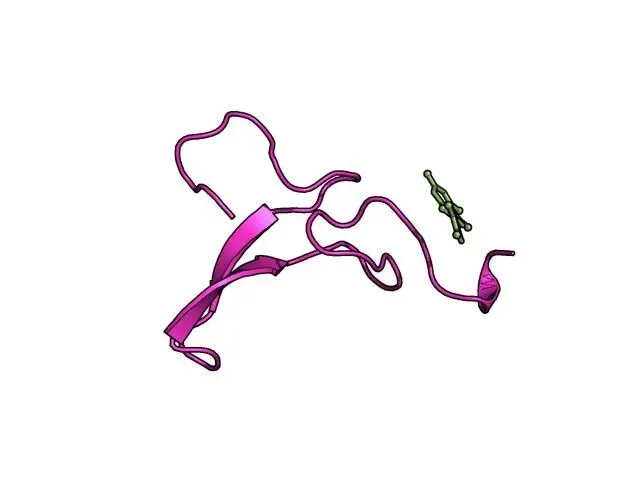 |
0、25、50、75、100 ns 五个时间点的结构快照(snapshot_0/25/50/75/100)。25 ns 时配体仍在初始口袋内,50 ns 时已离开原生口袋、处于迁移途中,75/100 ns 位于新的表面位点;蛋白骨架五个时间点基本重合。
7 构象采样、自由能地形与溶剂行为
7.1 主成分分析与 PCA 自由能面
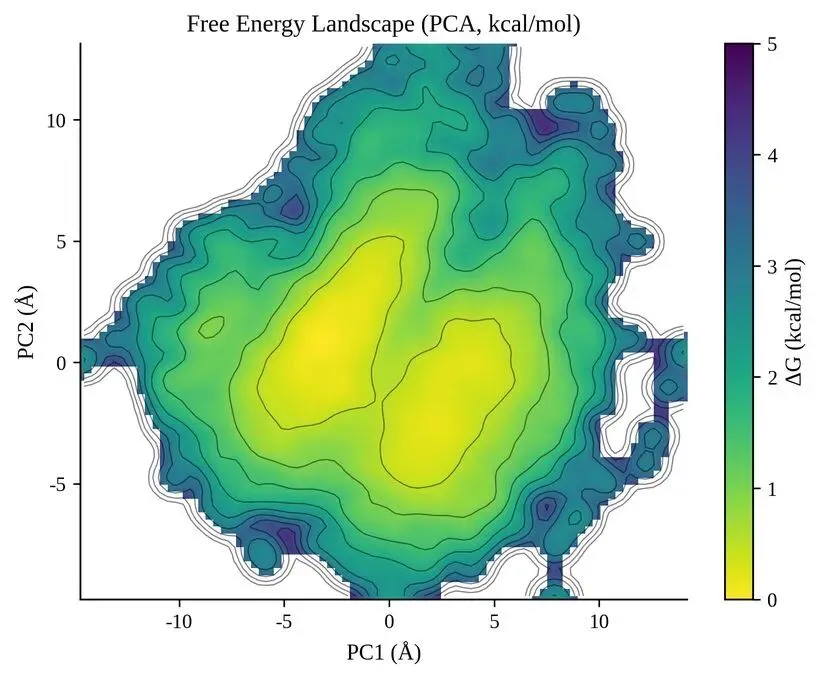 | 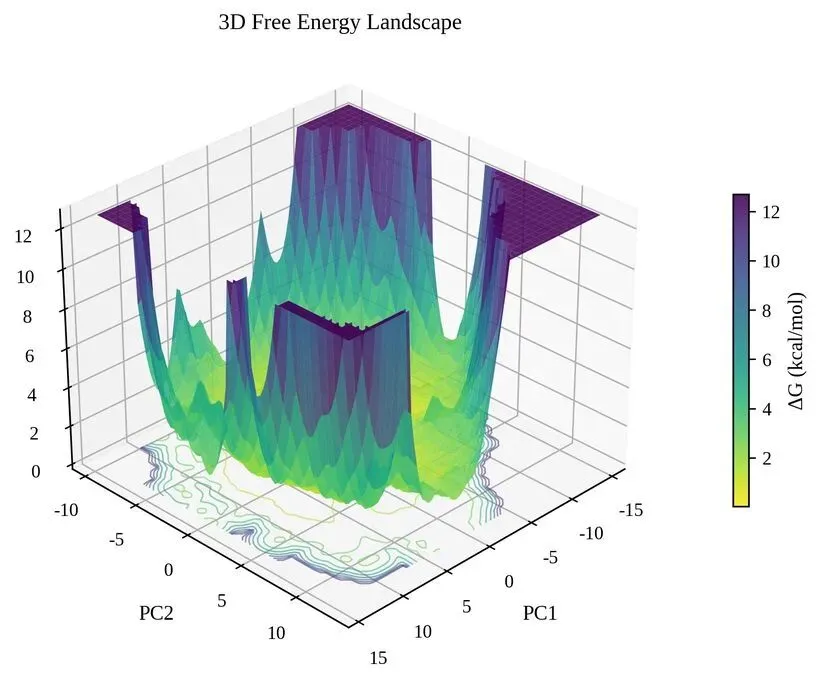 |
左:PC1–PC2 自由能地形图(pca_fel);右:同一数据的 3D 曲面(pca_fel_3d,底部为等高线投影)。
PC1 的标准差为 4.20 Å、PC2 为 3.42 Å,前两个主成分即捕获了骨架涨落的主要部分。 PC1 的完整范围为 −14.71至+14.19Å,PC2 为−9.77至+13.14Å;剔除两端各 2.5% 的离群采样后,95% 区间分别为−8.31至+7.80Å 与−6.10至+7.33Å。采样在二维面上分布较宽,但都落在同一个连续盆地内。
6400 个格点中有 5 361 个被占据(83.8%),ΔG最高 12.68 kcal mol−1, ΔG< 1kcal mol−1的低能区含 1 244 格(占全部 19.4%、占已占据 23.2%)。地形呈单主谷 + 低矮肩部的形态:主谷位于 PC1 ≈ −1、PC2 ≈ 0附近,肩部沿 PC1 正向延伸,对应 N/C 端环区的协同摆动。没有出现第二个可比深度的盆地,即 100 ns 内蛋白没有在两种构象之间切换。
7.2 主链 RMSD–Rg自由能地形图
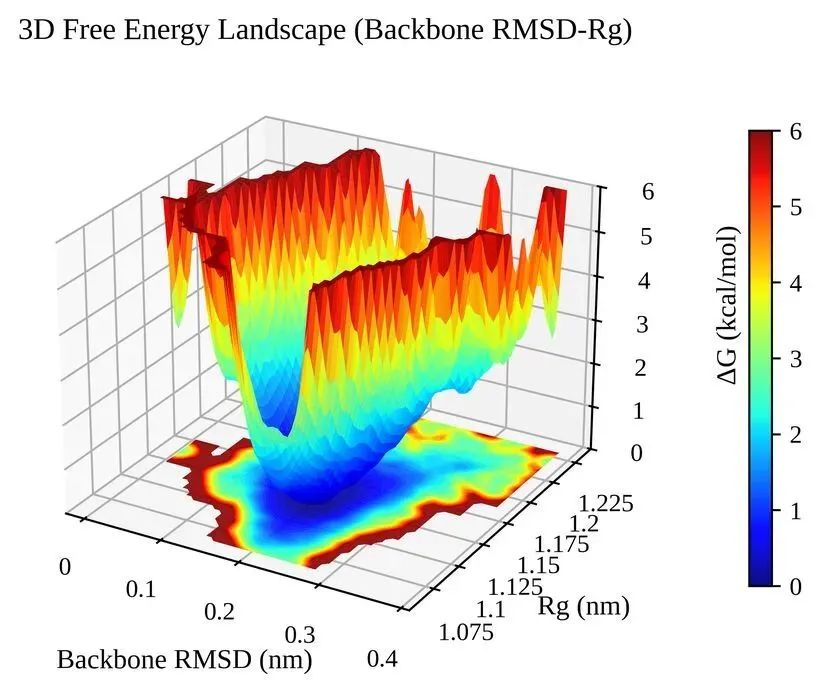
主链 RMSD–Rg3D 自由能地形图(rmsd_rg_fel_3d, inferno 配色、底部等高线)。横轴 RMSD(0–1 nm),纵轴 Rg(1.55–1.95 nm),高度与色标为 ΔG;色标上限截断为 6 kcal mol−1,真实数据上限为 13.86 kcal mol−1。
以蛋白主链 RMSD 与 Rg为坐标的 3600 格网格中,2 570 格被占据,ΔG最高 13.86 kcal mol−1,低能区(ΔG< 1kcal mol−1)含 432 格,占全部格点 12.0%、占已占据格点 16.8%。低能区覆盖 RMSD 1.25–2.60 Å、Rg10.86–11.68 Å,是一个狭长的 “窄盆地”,沿 RMSD 方向略宽、沿 Rg方向极窄——即蛋白可以在保持紧密度不变的前提下小幅调整骨架,但不能在保持折叠的同时显著膨胀或压缩。
图中色标截断在 6 kcal mol−1(真实上限 13.86)只是为了让主盆地与近侧肩部可辨,不表示能垒只有 6 kcal mol−1;从数据看,主盆地与外围之间至少存在 8 kcal mol−1以上的势垒,远大于 kBT(0.62 kcal mol−1),因此 100 ns 内不发生跨盆地跃迁是必然的。
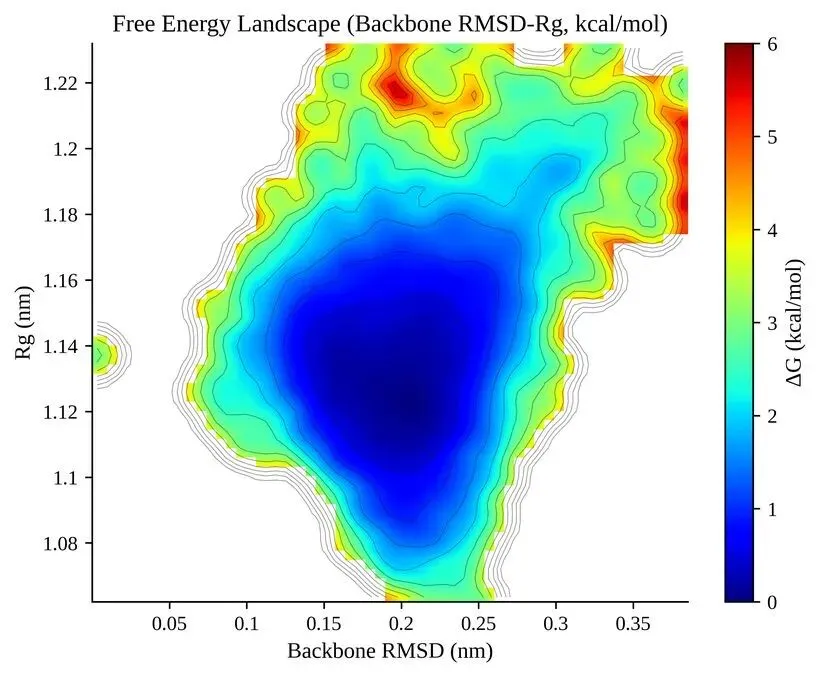 | 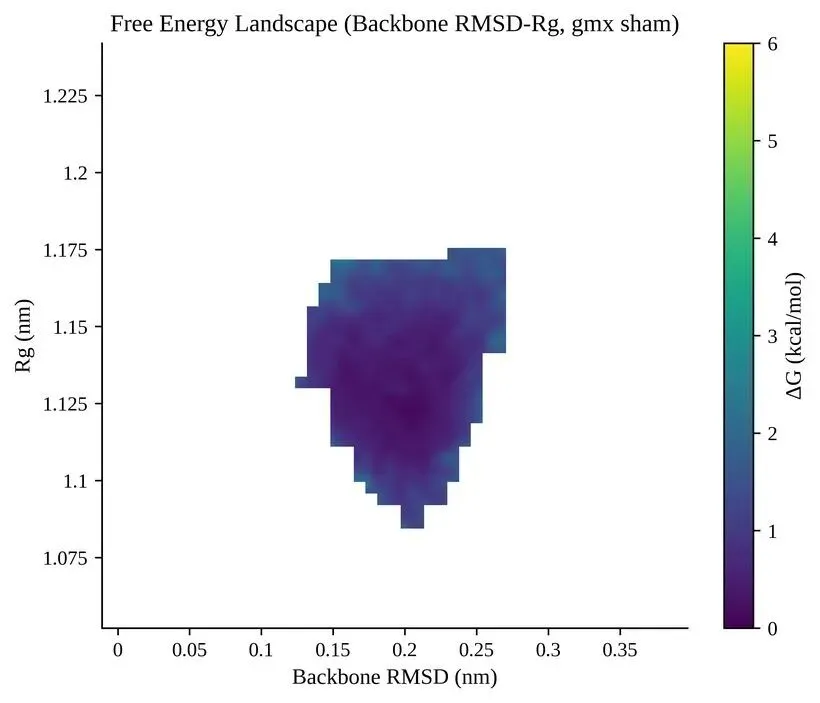 |
左:RMSD– R g 自由能面二维投影(rmsd_rg_fel);右:GROMACS 原生的二维自由能面(rmsd_rg_fel_2d_gmx)。
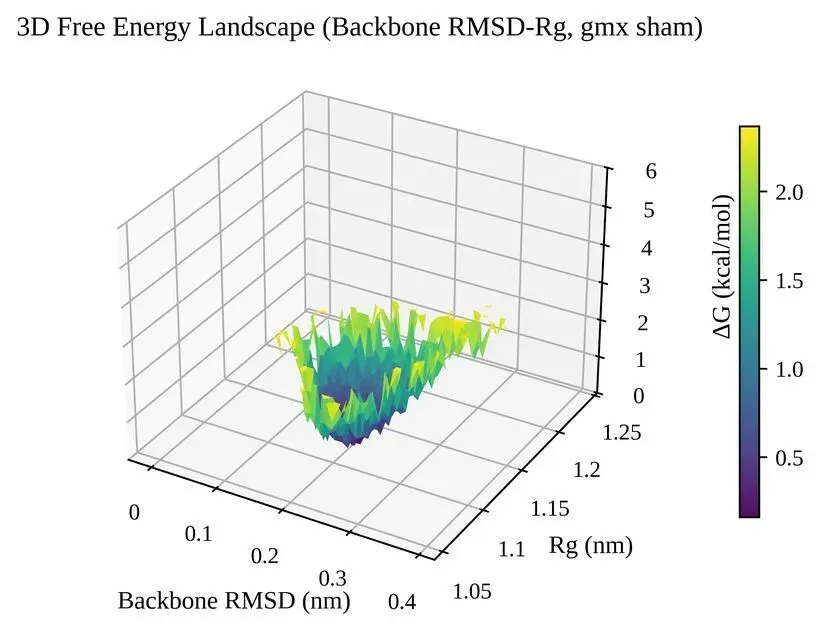
GROMACS 原生 3D 自由能面(rmsd_rg_fel_3d_gmx),与流水线版本互为独立实现,结论一致:单一窄盆地、无第二极小。
7.3 扩散、停留时间:本项目不可用项
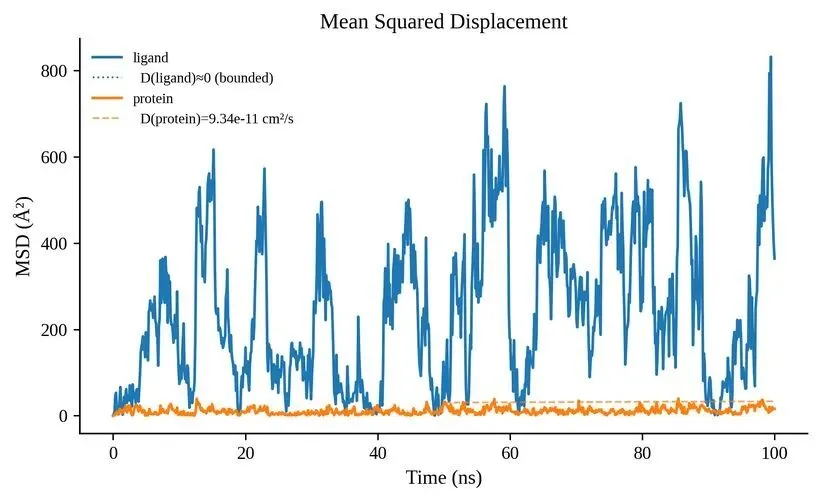 | 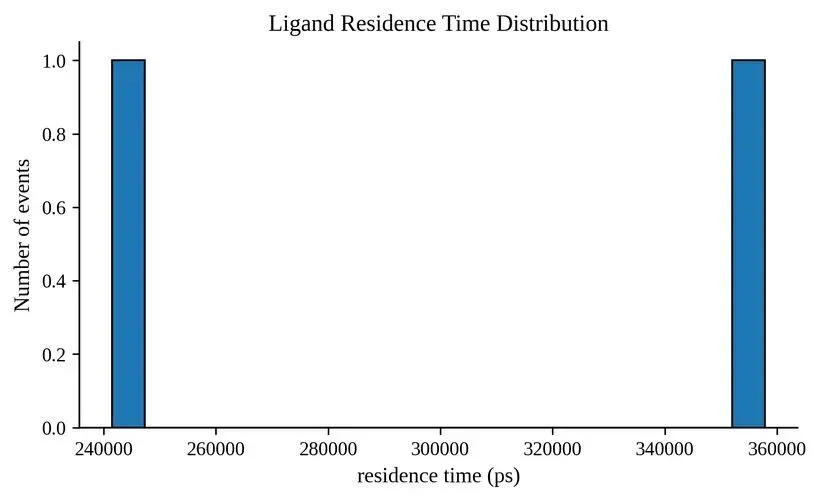 |
左:均方位移(diffusion_msd);右:停留时间分布(residence_time)。
MSD 不可用于求扩散系数。配体 MSD 在 99.4 ns 达到峰值 832 Å2,末值为 364 Å2;蛋白 MSD 峰值为 39.7 Å2,末值 15.9 Å2。两条曲线都不单调,MSD 出现回落意味着轨迹在拟合坐标系中被约束(周期性回卷或整体拟合),不满足 ⟨r2⟩ ∝ t的前提,任何线性拟合得到的扩散系数都会失真。本报告不给出扩散系数。
停留时间不可用,但不是“外推值”。输出仅 2 个接触事件:0–59.58 ns 与 59.76–99.96 ns,中间仅断开 0.18 ns(对应 59.6–59.7 ns 的 6 帧)。CSV 中的duration_ps把这两段记为 357 840 ps 与 241 560 ps,是绘图时按stride=6重复放大了 6 倍;真实时长分别为 59.6 ns 与 40.2 ns,并未超出轨迹长度。因此这一项不能给出停留时间常数,但它的两个事件恰好证明配体全程维持接触。
7.4 旋转自相关与密度分布
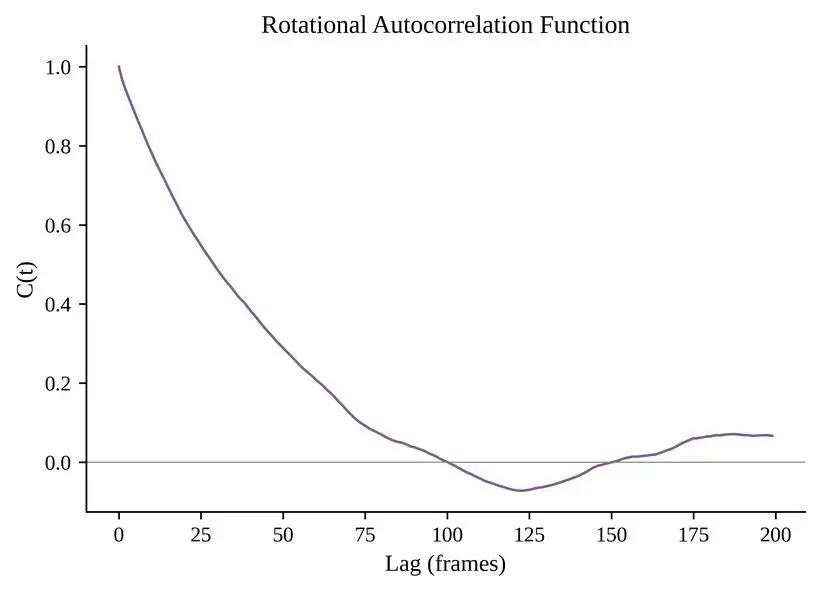 | 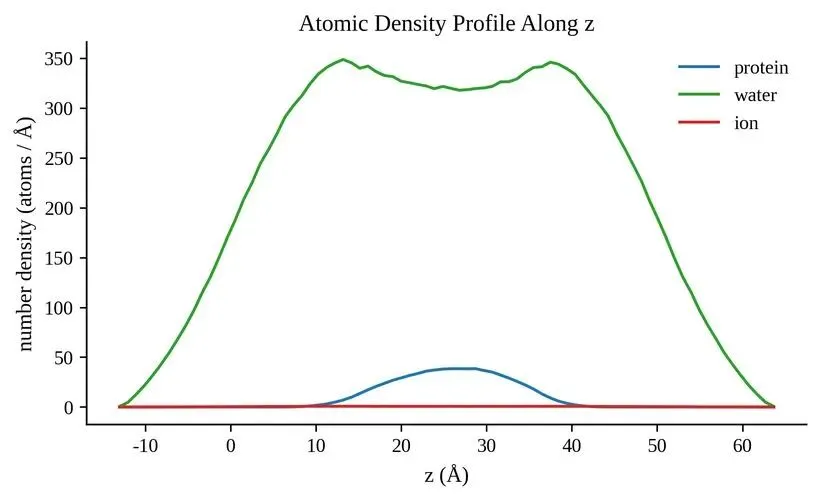 |
左:配体旋转自相关(rotacf);右:沿 z 的密度分布(density_profile,蛋白/水/离子)。
旋转自相关在 lag ≈ 42处降到 1/e(末值 0.066)。若 lag 以 10 ps 帧计,对应约 0.42 ns 的旋转关联时间,说明木犀草素在结合态内可快速翻转/摆动—— 这与位姿 RMSD 在 0–10 ns 内就从 0 升到 6 Å的现象一致。该时间常数只应作量级参考:lag 的绝对单位未在输出中标注,且配体迁移后环境改变会进一步拉低相关值。
密度分布显示水在 z方向形成平坦的平台(体相密度),蛋白占据中心约 3 nm 的区间,离子在蛋白表面附近出现富集峰;没有出现水被排出形成的空腔,说明体系溶剂化正常,不存在真空泡。
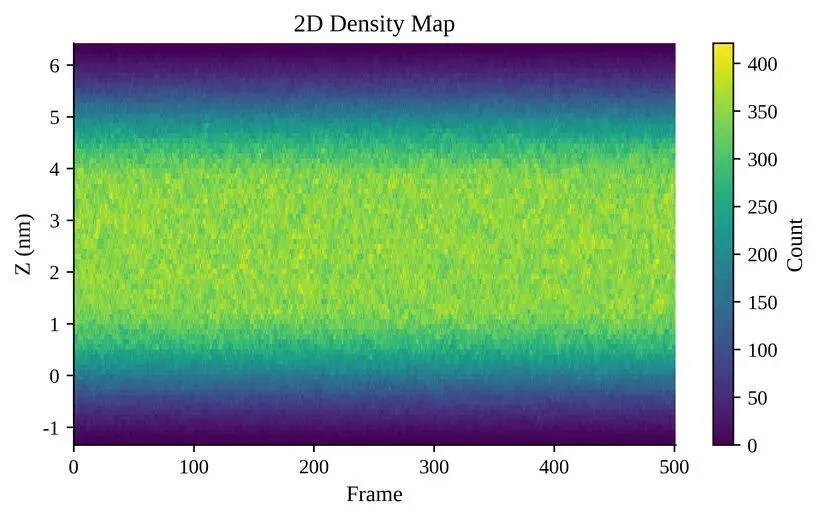 | 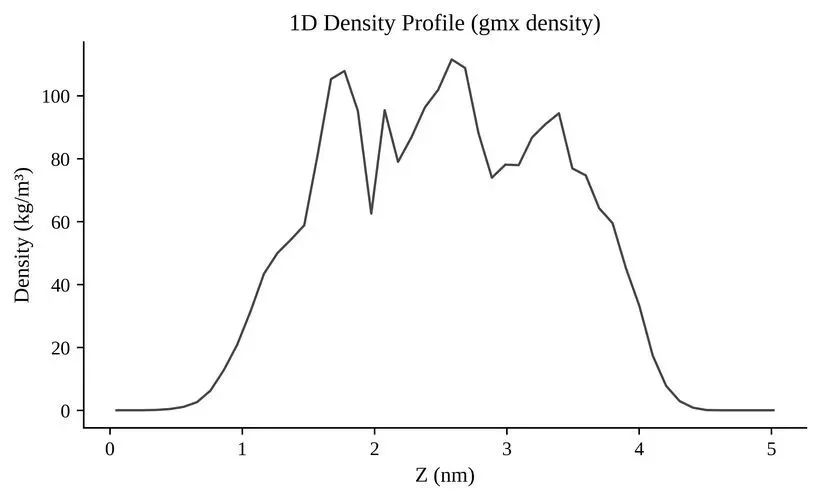 |
左:密度随时间的二维图(densmap);右:GROMACS 原生密度图(densmap_gmx)。
7.5 RDF、散射与 van Hove:失效与可用项
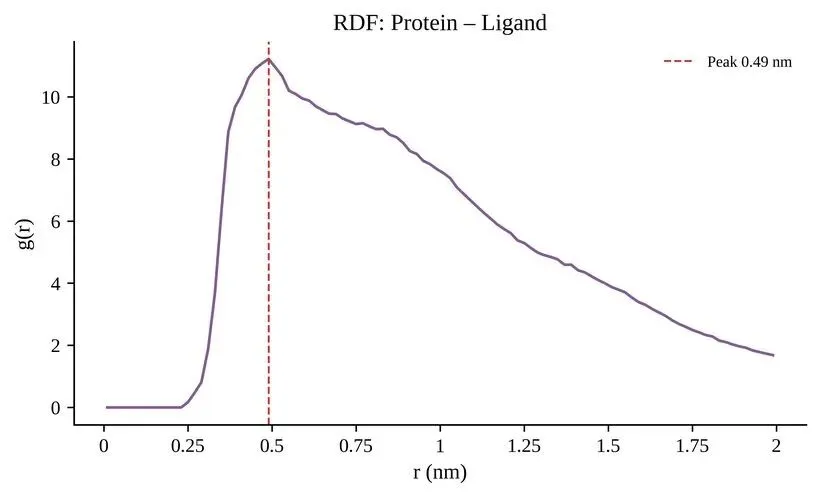 | 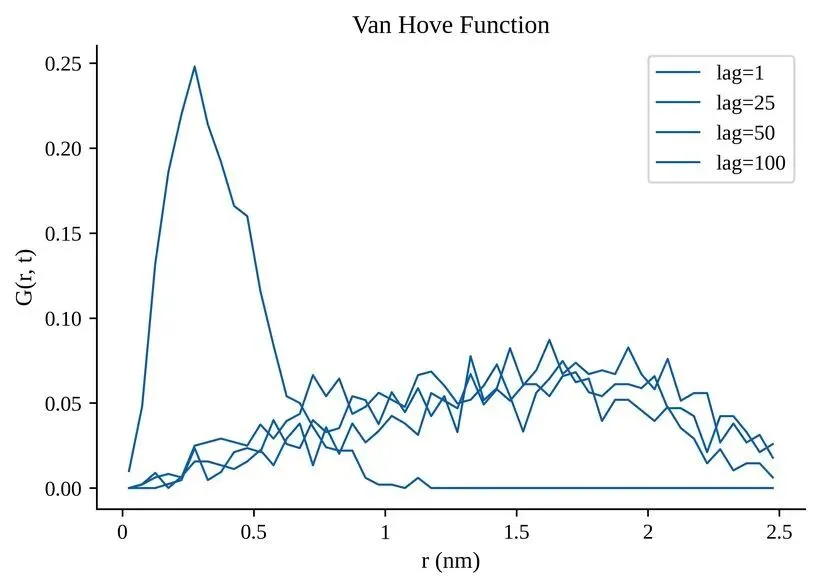 |
左:配体–蛋白径向分布函数(rdf);右:van Hove 函数(vanhove)。
RDF 只能读峰位,不能读峰高。曲线在 3 Å 以内接近 0(2.5 Å 起有微量),从 4.1 Å 起快速上升,峰顶在 4.9 Å(g≈ 11.2),此后单调衰减,但到 20 Å 仍有 1.68,始终没有趋近 1。对配体–蛋白体系而言,峰高 11 偏高、远端不收敛,说明归一化不当(很可能是按全盒平均密度而非壳层体积归一),因此 g(r)的绝对值不可信。可用的信息只有峰位:主峰 3.9–4.9 Å 与氢键/范德华接触的距离区间一致,次峰肩部对应第二溶剂化层;本报告不据此计算配位数,也不用峰高比较结合强弱。
van Hove 函数在短 lag 呈单峰,随 lag 增大峰位外移、峰高下降,形态符合扩散展宽;但由于其底层轨迹同样受拟合坐标系影响,只宜作定性描述。
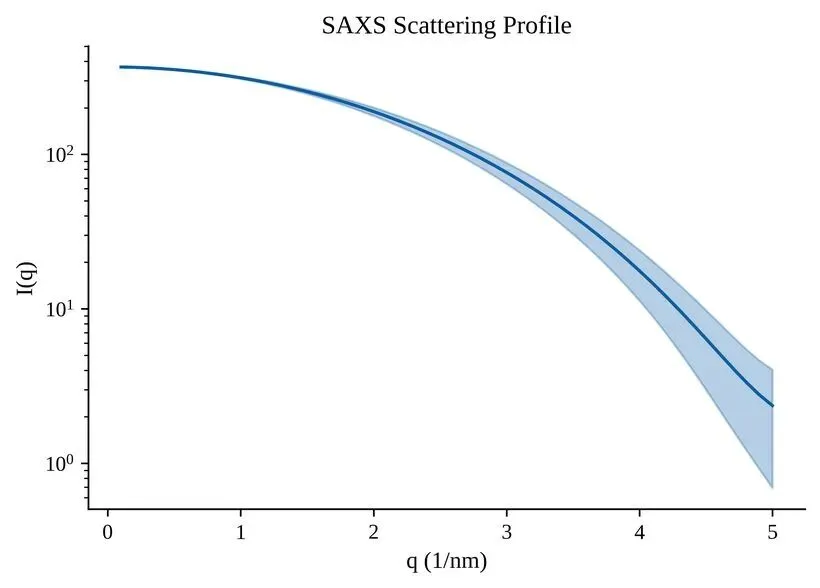 | 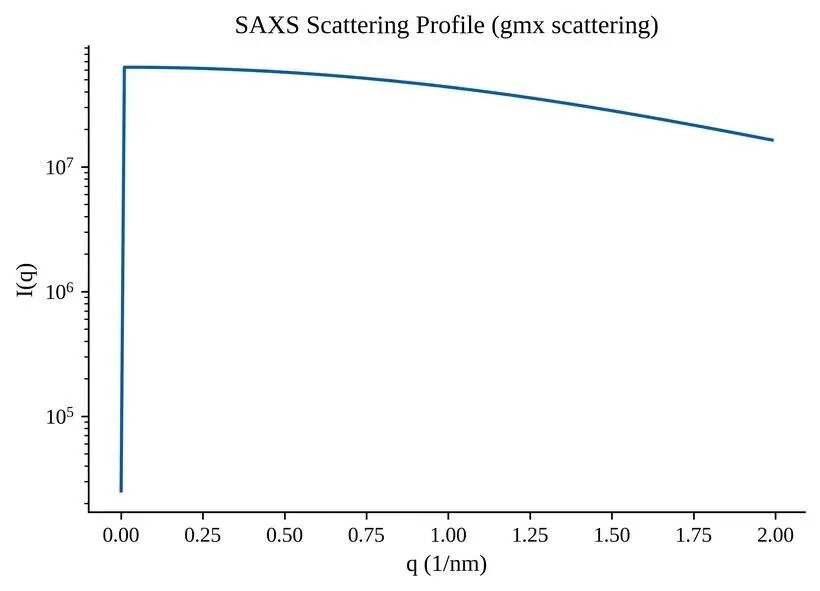 |
左:散射曲线(scattering, q 0.01–0.5 Å −1);右:GROMACS 原生散射(scattering_gmx)。
散射强度 I(q)在低 q端为 367(q= 0.01Å−1),随 q增大单调下降,与致密球状颗粒的形态因子一致;两种实现给出的曲线形状相同,可作为体系均一性的辅助证据。
7.6 自由体积
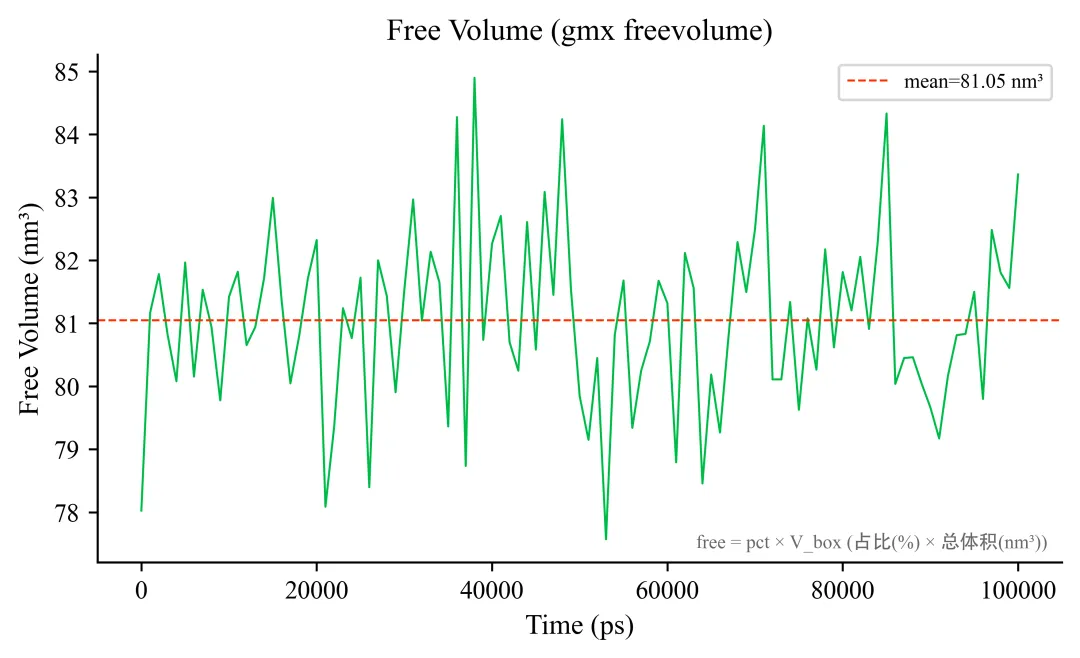
当前分析改用 GROMACS 原生 gmx freevolume,按自由体积百分比 × 盒子总体积换算。101 个采样点为 81.05 ± 1.40 nm³,范围 77.57–84.90 nm³,相对波动约 1.7%;图形直接按真实体积绘制,均值线约 81 nm³。旧 MDA 分支的全 0 伪结果已停止使用。
8 结合自由能:MM/GBSA 与能量分解
8.1 总结合自由能与分项
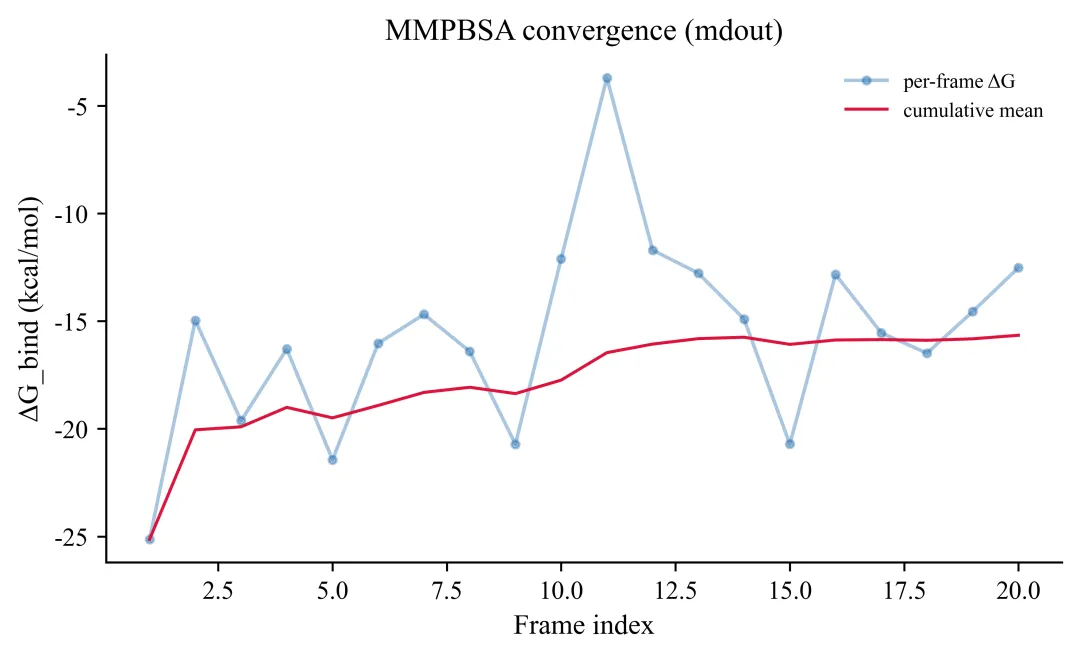
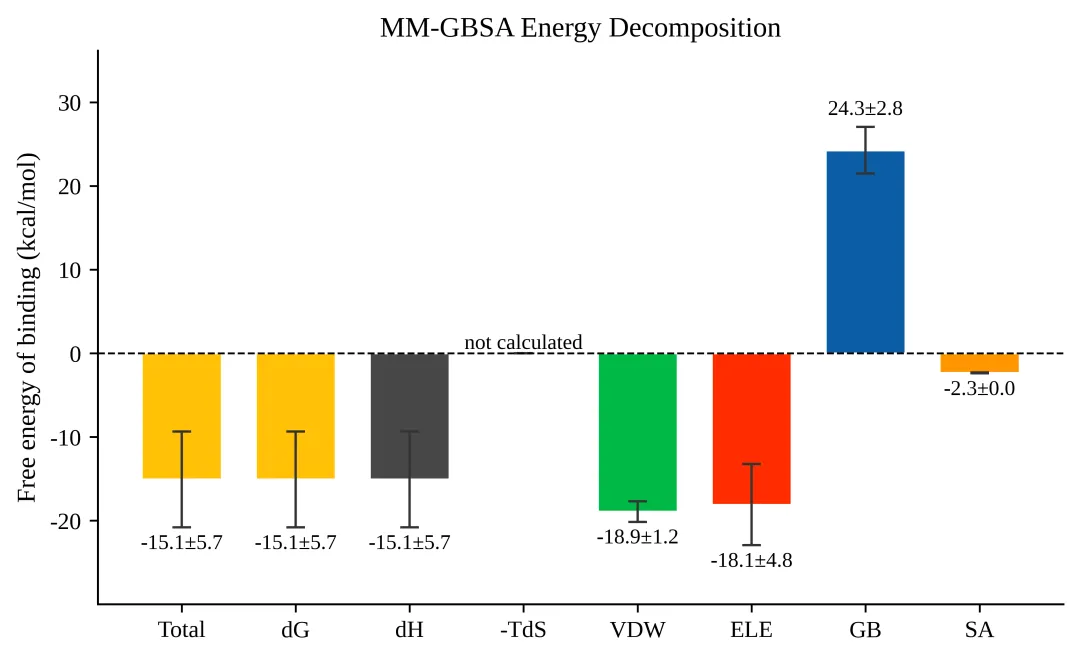
左:逐帧结合自由能收敛图(mdout 重算,非恒定);右:MM/GBSA 能量分项。
gmx_MMPBSA(GB,gbn2,igb= 8,0.15 M 盐,310 K)在 20 帧上给出
ΔGbind= −15.06 ± 4.39 kcal mol−1(SEM= 0.98),
分项为:ΔEvdW= −18.92、ΔEele= −18.08、 ΔGpolar= +24.27、ΔGnonpolar= −2.34kcal mol−1;气相项 ΔGgas= −37.00,溶剂化项 ΔGsolv= +21.94kcal mol−1。
解读要点:
结合由范德华与静电共同驱动,两者量级相近(−19vs −18kcal mol−1);极性溶剂化几乎抵消了静电(+24.27对 −18.08),净静电贡献仅约 −6kcal mol−1。这与配体是中性黄酮、口袋以疏水残基为主的图像一致。
非极性溶剂化仅 −2.34kcal mol−1,说明埋藏疏水表面的收益不大,结合更像是“形状匹配 + 少量定向作用”,而不是强疏水驱动。
分项图给出的 Total 为 −15.1 ± 5.7kcal mol−1(帧间标准差),与
FINAL_RESULTS_MMPBSA.dat的 −15.06(SD 4.39、SEM 0.98)一致到 0.1 kcal mol−1,误差大小不同来自分块平均;两者可互相印证。本项不含熵项:图中 −TΔS标注为 not calculated,因此上述数值实质是焓的估计(ΔH),真实结合自由能会被构象熵抵消一部分,亲和力应弱于该数值。
逐帧收敛图已由三份 sander mdout 重新生成:20 帧 ΔG 范围为 −25.14 至 −3.70 kcal/mol,累计均值约 −15.66 kcal/mol,曲线不再是一条 0 线。新的 mmpbsa_convergence.csv 保存逐帧 ΔG 与累计均值;总结合自由能仍以 FINAL_RESULTS 的 ΔTOTAL 为准。
必须强调:这 20 帧不是同一状态。mmpbsa.in设为startframe=1, endframe=100, interval=5,对应 1、6、11…96 ns;其中 1–41 ns 的 9 帧仍在初始口袋,46–96 ns 的 11 帧已迁移到新的表面位点。分段统计给出:初始口袋段 −17.79 ± 3.34kcal mol−1,迁移后段 −12.83 ± 3.86kcal mol−1,合并值才是 −15.06kcal mol−1。因此 −15.06是两态混合值,既不能代表初始口袋,也不能代表 100 ns 平均;初始口袋的结合焓应取约 −17.8kcal mol−1。若要报告亲和力,应按 0–45 ns 重新采样并单独运行 MM/GBSA。
8.2 逐残基能量分解
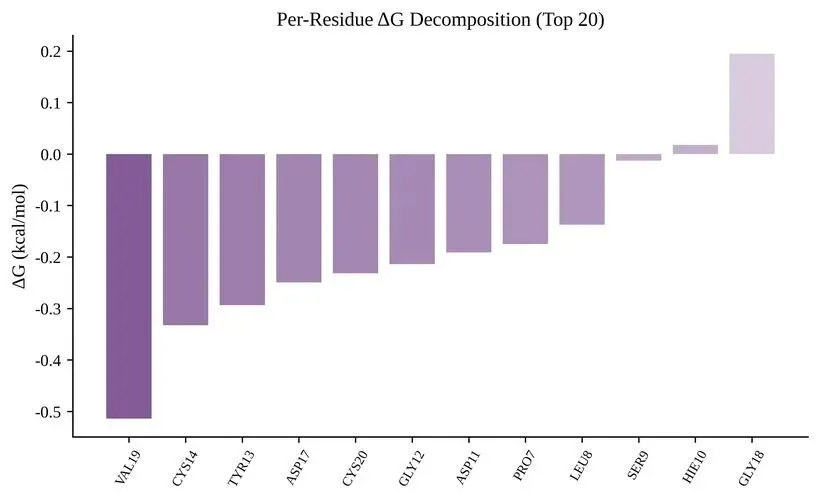 | 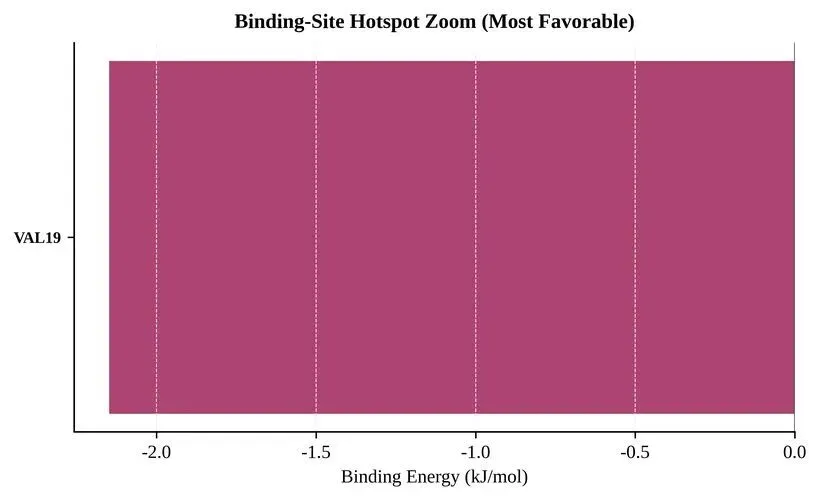 |
左:逐残基能量贡献(residue_energy_bar);右:能量热点图(residue_energy_hotspots)。
逐残基分解(20 帧平均)给出主要贡献:配体自身项 −5.68kcal mol−1, Val19 −0.51、Cys14 −0.33、Tyr13 −0.29、Asp17 −0.25、Cys20 −0.23、 Gly12 −0.21、Asp11 −0.19、Pro7 −0.17、Leu8 −0.14kcal mol−1。贡献最集中的是 Val19、Cys14、Tyr13 三个残基,与 PLIF 中接触频率最高的 Gly12/Leu15/Cys14/Cys20/Gly18 高度重叠。
注意:本文件只分解了配体自身项(−5.68)与 12 个邻近残基(合计约 −2.1),两项之和约 −7.8,小于总 ΔG(−15.06kcal mol−1)。这既因为分解只涵盖口袋附近残基,也因为 GB 分解本身不是严格可加的。因此只能用“相对排序”识别热点,不能用单项绝对值做定量论证。
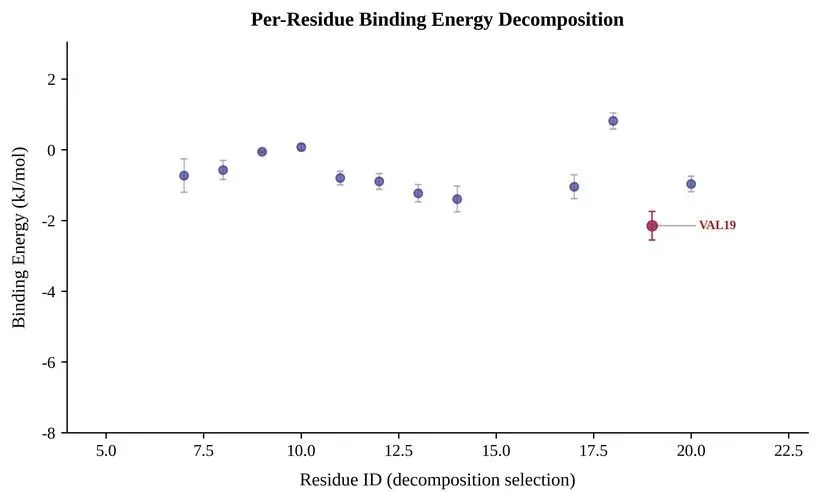 | 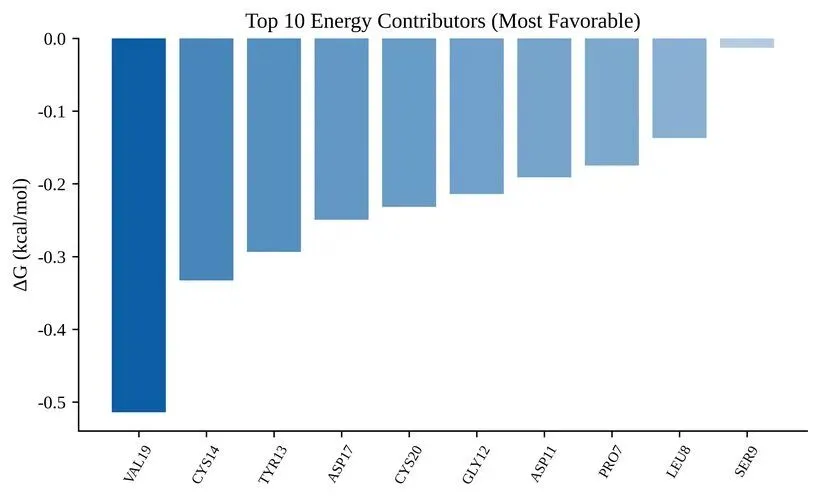 |
左:残基能量散点(residue_energy_scatter,横轴接触/距离、纵轴能量);右:贡献最大的 10 个残基(top10_energy_contributors)。
散点图显示,能量贡献与接触频率总体正相关(接触越多、能量越负),但存在离群点: Asp17 的接触频率不高却贡献 −0.25kcal mol−1,说明其作用以静电为主而非范德华接触; Gly12 接触多但贡献有限,符合“甘氨酸无侧链、只提供骨架接触”的预期。
8.3 线性相互作用能(LIE)
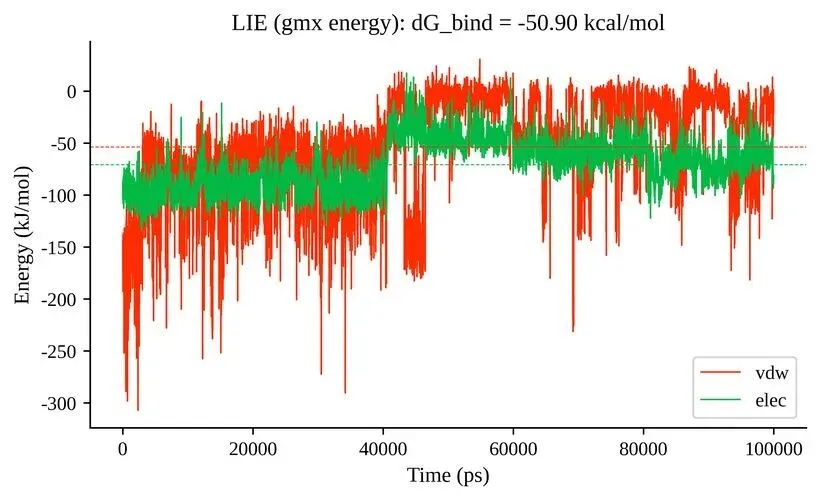
线性相互作用能分解(lie_energy_gmx):范德华与静电项随时间。
LIE 的范德华项由初始口袋段的 −85.8kJ mol−1衰减到迁移后的 −28.7kJ mol−1,静电项由 −92.9降到 −59.1kJ mol−1。两项在 45 ns 附近同步减弱,与氢键、接触、SASA 的转折一致,从能量角度再次确认口袋迁出事件。 LIE 未做校准(α、β未给定),因此只用于趋势判断,不转换为结合自由能。
9 讨论、局限与结论
9.1 为什么木犀草素会离开初始口袋
把六类证据放在同一条时间轴上,可以还原出一个自洽的机制:
初始结合本身是“松”的。0–10 ns 位姿 RMSD 就从 0 升到 6.0 Å,而配体内部构象 RMSD 仅 0.86 Å(最大 1.62 Å)。这说明木犀草素一进入模拟就发生了整体滑移/转向,而不是内部变形。EGF 表面是一个由 Gly12/Leu15/Gly18/Val19 与 Cys14/Cys20 围成的浅槽,没有深腔把配体“卡住”。
锚定作用不足。蛋白–配体氢键全轨迹平均 0.81 条/帧(0–40 ns 为 1.80),寿命中位数 10 ps,且集中在 Cys14/Cys20/Asp17 三个残基;Tyr44 虽在 PLIF 中频率最高(0.53),但其芳香侧链主要提供疏水/π堆积,并未形成持续氢键; Arg45 的氢键占据率仅 0.055。对分子量 286 的黄酮而言,仅靠形状匹配与瞬态氢键,难以在 310 K 下长期驻留于初始口袋。
所处表面是浅槽。口袋体积(以配体为中心的 8 Å 凸包)在 50 ns 降至 207 Å3、末帧回升至 703 Å3,说明配体在迁移途中经过一个更暴露的位置;该指标不能证明初始口袋塌陷,但可以确认配体所处环境从“较深”变为“较浅”、随后在新位点重新包埋。
能量上也只是中等强度。初始口袋段的 MM/GBSA 为 −17.8kcal mol−1(9 帧),迁移后段为 −12.8kcal mol−1(11 帧);范德华与静电各约 −19,被极性溶剂化抵消到净 −6;非极性项仅 −2.3。形式换算的 Kd约 10−13M,但未计熵、单轨迹、固定电荷 GB 的系统误差可达数 kcal,不能据此断言强结合。
相反,蛋白本身在 100 ns 内高度稳定(CαRMSD 2.0 Å,Rg标准差 0.23 Å,单一构象簇占 98%)。因此口袋迁出不是蛋白失稳导致的,而是配体在浅槽中缺乏足够锚定的结果。需要强调:配体离开口袋后并未离开蛋白,而是在表面另一区域重新吸附——这更支持“表面浅槽 + 弱锚定”的解释,而不是“配体被排斥到溶剂中”。
9.2 与已有认识的对照
EGF 结构域以三个二硫键(C6–C20、C14–C31、C33–C42)稳定一个小型 β-发夹,其表面缺乏深口袋。木犀草素与 EGF 结构域的直接实验结合数据有限,本模拟只能作为假设生成:黄酮骨架可以把 EGF 表面当作临时结合面,但在本力场/水模型下难以在初始口袋形成长时间稳定的复合物。需要说明,这只是一个体系、一条轨迹的观察,不能外推为“木犀草素不结合 EGF”。
9.3 局限
单轨迹、单种子。所有 ±为时间标准差,不含重复样本误差;口袋离开时刻(45–60 ns)不能视为可重复的动力学常数。
时间尺度。100 ns 只覆盖“初始口袋调整 + 一次口袋迁出 + 表面再吸附”,无法判断这一过程是否可逆(轨迹中未观察到回到初始口袋,但配体全程基本保持接触)。
MM/GBSA 的近似。未计算熵项,采用单轨迹近似,GB 模型对埋藏电荷的处理有系统误差;20 帧跨两个状态(1–41 ns 的 9 帧、46–96 ns 的 11 帧),合并值 −15.06kcal mol−1是混合值,初始口袋段约 −17.8kcal mol−1。
力场与水模型。Amber14SB/GAFF2/TIP3P 对黄酮–蛋白体系的结合自由能通常有 1–3 kcal mol−1的偏差;TIP3P 低估水的有序化,可能低估疏水作用。
Ramachandran 离群。Gly39(100%)、Arg41(97%)、Gly36(87%)的离群率偏高,虽可由环区柔性解释,但仍提示该段构象采样不足,需更长时间验证。
已重算项:freevolume 改用 gmx freevolume,均值约 81.05 ± 1.40 nm³;mmpbsa_A_convergence 由三份 sander mdout 重算,20 帧 ΔG 非恒定;helix_orient_gmx 在无连续螺旋时按不适用跳过,不再输出伪零线。rdf、diffusion_msd、residence_time、chi_dihedral_gmx 等项目仍按原有限制说明。 水桥统计受限:重算后的 water_bridge 在 201 个采样帧上平均 1.58 条/帧、最大 9 条,零桥帧占 58.2%;说明水桥为间歇性界面作用,但不足以量化其对口袋迁出路径的自由能贡献。 盐桥只解析到明细层。汇总表
saltbridge.csv的残基编号列为空,需回退到saltbridge_details.csv才能得到 Lys28–Glu40、Lys48–Asp46、 His10–Asp11 三对;结论不受影响,但流水线输出应修正。
9.4 结论
蛋白骨架稳定:CαRMSD 1.99 ±0.38 Å,Rg11.36 ±0.23 Å, β-折叠 31%、α-螺旋 5.6%,二硫键半胱氨酸 RMSF 最低(0.52–0.57 Å)。
复合物 RMSD(4.80 Å,最大 7.24 Å)与配体位姿 RMSD(14.1 Å)的升高源于配体位移,不是蛋白失稳;配体内部构象保持刚性(0.86 Å)。
木犀草素在 45–60 ns 离开初始口袋并迁移到表面另一区域:位姿 RMSD 4.5 →21.5 Å,质心距离 10.1 →19.2 Å(峰值,末帧 13.4 Å),相对漂移 3.4(40 ns)→26.7 Å,氢键 1.80(0–40 ns)→0.15 条/帧,接触原子对 159 →96。但配体全程基本未脱离蛋白(仅 6 帧最近距离 > 4.5Å;末帧最近距离 2.42 Å、96 个接触、SASA 187 Å2),因此是“表面迁移” 而不是“完全解离”。
初始结合模式以 Val19、Cys14、Tyr13、Cys20、Gly12/Leu15 为核心,氢键集中在 Cys14/Cys20/Asp17;整体为浅槽形状匹配,缺少持续锚定。
MM/GBSA 的 20 帧合并值 ΔGbind= −15.06 ± 4.39kcal mol−1是两态混合值;初始口袋段(9 帧)为 −17.79 ± 3.34kcal mol−1,迁移后段(11 帧)为 −12.83 ± 3.86kcal mol−1。未计熵,不等同于 100 ns 平均亲和力。
9.5 建议的后续验证
以不同随机种子重复 3–5 条 100 ns 轨迹,统计“口袋离开时间”分布,判断 45–60 ns 是否稳健,并统计配体最终停留的表面位点。
对 0–45 ns 的初始口袋段单独做 MM/GBSA(增加帧数、加入熵校正),并与迁移后段对比,量化两态差异。
用伞形采样或 metadynamics 沿“初始口袋 →表面新位点”的路径计算自由能曲线,与 MM/GBSA 的 −17.8kcal mol−1交叉验证。
补做水桥分析与界面水合位点统计,检验水分子是否在口袋迁出路径上起“润滑”作用。
若用于先导化合物优化,应优先在 Val19/Cys14/Tyr13 一侧增加刚性基团或可形成双齿氢键的取代基,并考虑 Tyr44 的 π堆积,以延长在初始口袋的驻留时间。
参考文献
99
Abraham MJ, Murtola T, Schulz R, et al. GROMACS: High performance molecular simulations through multi-level parallelism from laptops to supercomputers. SoftwareX2015;1–2:19–25.
Case DA, Aktulga HM, Belfon K, et al. Amber 2021. University of California, San Francisco, 2021.
Maier JA, Martinez C, Kasavajhala K, et al. ff14SB: Improving the accuracy of protein side chain and backbone parameters from ff99SB. J Chem Theory Comput2015;11:3696–3713.
Wang J, Wolf RM, Caldwell JW, et al. Development and testing of a general amber force field. J Comput Chem2004;25:1157–1174.
Jorgensen WL, Chandrasekhar J, Madura JD, et al. Comparison of simple potential functions for simulating liquid water. J Chem Phys1983;79:926–935.
Ogiso H, Ishitani R, Nureki O, et al. Crystal structure of the complex of human epidermal growth factor and receptor extracellular domains. Cell2002;110:775–787.
Lin Y, Shi R, Wang X, Shen HM. Luteolin, a flavonoid with potentials for cancer prevention and therapy. Curr Cancer Drug Targets2008;8:634–646.
Valdés-Tresanco MS, Valdés-Tresanco ME, Valiente PA, Moreno E. gmx_MMPBSA: A new tool to perform end-state free energy calculations with GROMACS. J Chem Theory Comput2021;17:6281–6291.
Genheden S, Ryde U. The MM/PBSA and MM/GBSA methods to estimate ligand-binding affinities. Expert Opin Drug Discov2015;10:449–461.
Nguyen H, Roe DR, Simmerling C. Improved generalized Born solvent model parameters for protein simulations. J Chem Theory Comput2013;9:2020–2034.
Humphrey W, Dalke A, Schulten K. VMD: Visual molecular dynamics. J Mol Graph1996;14:33–38.
Kabsch W, Sander C. Dictionary of protein secondary structure: pattern recognition of hydrogen-bonded and geometrical features. Biopolymers1983;22:2577–2637.
Shrake A, Rupley JA. Environment and exposure to solvent of protein atoms. Lysozyme and insulin. J Mol Biol1973;79:351–371.
Amadei A, Linssen ABM, Berendsen HJC. Essential dynamics of proteins. Proteins1993;17:412–425.
Daura X, Gademann K, Jaun B, et al. Peptide folding: when simulation meets experiment. Angew Chem Int Ed1999;38:236–240.
Roe DR, Cheatham TE. PTRAJ and CPPTRAJ: software for processing and analysis of molecular dynamics trajectory data. J Chem Theory Comput2013;9:3084–3095.
Hess B, Bekker H, Berendsen HJC, Fraaije JGEM. LINCS: a linear constraint solver for molecular simulations. J Comput Chem1997;18:1463–1472.
Essmann U, Perera L, Berkowitz ML, et al. A smooth particle mesh Ewald method. J Chem Phys1995;103:8577–8593.
Bussi G, Donadio D, Parrinello M. Canonical sampling through velocity rescaling. J Chem Phys2007;126:014101.
Bernetti M, Bussi G. Pressure control using stochastic cell rescaling. J Chem Phys2020;153:114107.
附录
A 分析项清单与状态
本报告覆盖分析目录下全部 72 个图像文件(71 项分析,其中ligand_rmsd为矢量 PDF)。状态说明: “有效”指数据可用于定量解读;“受限”指可定性使用但存在口径问题; “失效”指输出不合理,未在正文引用其数值。
稳定性、柔性、配体与氢键类分析项。
结构、采样、溶剂与能量类分析项。
B 数值速查
核心指标汇总(37.5–100 ns 或全轨迹,按指标定义)。
| Rg | |
| ΔGbind | −15.06 ± 4.39 |
| ΔGbind | −17.79 ± 3.34 |
| ΔGbind | −12.83 ± 3.86 |
说明:本文所有图像与数值来自 LKDock 分析流水线(3.analyses/custom__EGF_vs_luteolin)原始输出,图像未重绘,数值由同名 CSV 现算。每个条件仅一条 100 ns 轨迹,文中“±”均为时间标准差,反映轨迹内涨落,不是重复样本的统计误差。