研报速递
Rhododendron macabeanum Watt ex Balf.f.(玛卡贝娅杜鹃/马氏杜鹃/麦克亚当杜鹃,常归入大叶杜鹃类群 Subsection Grandia)
玛卡贝娅杜鹃是大叶亚组最重要的杂交亲本来源,杂交后代丰富,在欧州和新西兰栽培广泛。区别于同亚组其它成员,玛卡贝娅杜鹃具有四个重要特点:一,籽播十五年内可以开花,区别于同亚组的二十五至五十年首花;二,易发现金黄色特别花色个体,区别于同亚组的奶黄色系;三,可耐受零下18度,耐寒性比同亚组成员更强;四,具有侏儒型更耐寒亚种。
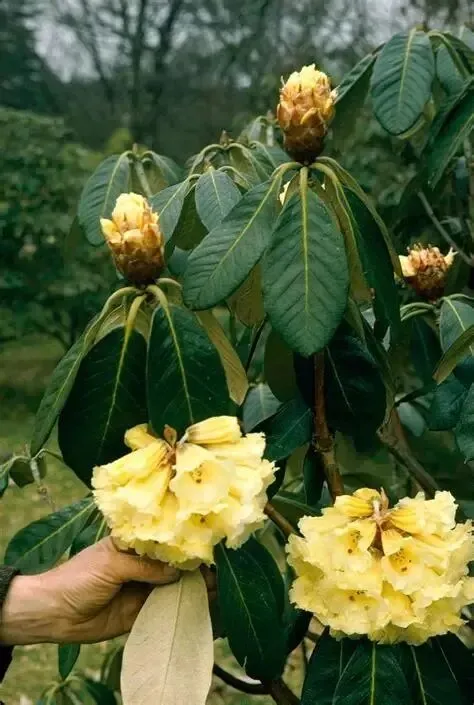
Rhododendron macabeanum 是印度东北部那加丘陵地区特有的大型常绿杜鹃,以巨大的革质叶片、叶背厚绒毛层、柠檬黄至奶油黄色钟形花冠以及喉部紫色斑点而著称。其植株可长成 7–15 米的小乔木,树皮粗糙剥落,枝条扭曲,生态上生于海拔约 2400–3000 米的山坡森林中。该物种被评估为濒危,主要受森林砍伐、滑坡和火灾威胁。在栽培上,它喜欢酸性、排水良好、湿润而温和的气候,具有一定的耐寒性,常被归为 RHS H3–H4 或 H4 等级,约可耐 -12°C 至 -18°C,但不同来源和不同栽培条件下差异明显。其耐热性缺乏直接、量化的最高温度阈值记录,现有资料更多显示它偏好凉爽湿润、半阴和避风环境,并非耐热育种中的核心亲本。从种子到首次开花通常需要约 9–13 年,部分个体或杂交后代可能接近 15 年。作为杂交亲本,R. macabeanum 最突出的贡献是巨大叶片、黄色至奶油色花色体系和紫色喉斑;已记录组合包括 ‘King Size’、‘Queen Size’、‘Big Mac’、‘Mundai’ 杂交、‘Jack Anderson’、‘Arizelum × macabeanum’、‘Sinogrande × macabeanum’ 等。其后代叶大小通常可出现大型化或中间型,但并非所有组合都明显表现其叶形影响;花色遗传复杂,黄色并不总是显性,紫色斑点可能保留也可能减弱;耐寒性可通过与耐寒亲本杂交得到改善,但回交 R. macabeanum 可能稀释耐寒性;耐热性则几乎没有针对该物种后代的可验证数据,不能假定其杂交后代具有耐热优势。总体而言,R. macabeanum 是“大叶、黄冠、紫斑、建筑感株型”的重要亲本资源,但使用时应把耐寒、耐热、排水和 provenance(产地来源)纳入系统选育与区域试验。
一、分类地位、名称与报告边界
R. macabeanum 属于杜鹃花属中大叶杜鹃类群 Subsection Grandia,该亚组以非常巨大的叶片著称。其学名常写作 Rhododendron macabeanum Watt ex Balf.f.,1882 年由 Sir George Watt 在 Japfo 山系海拔 8000–9500 英尺处首次发现。
需要特别说明的是,R. macabeanum 的形态变异很大:叶片大小与形状、叶背 indumentum(绒毛层)颜色、花序密度和花色深浅均存在个体与产地差异。因此,任何关于其“典型特征”的描述都应理解为范围而非固定模板。另一个关键点是,现有资料中关于其耐寒性存在明显差异,关于耐热性则几乎没有直接阈值数据;本报告将把“已记录事实”“园艺经验”“合理推断”和“研究空白”分开表述,避免把推断误写成实验结论。
二、花部形态特点
2.1 花序、花数与花形
R. macabeanum 的花序为顶生密集伞形或圆锥状 truss,每束通常有 12–30 朵花,多数资料集中在 15–25 朵,另有文献记录为 15–30 朵;花冠大型,呈管状至窄漏斗状或钟形,长度和口径都很有视觉冲击力,是其作为大叶杜鹃代表种的重要观赏特征。花序密度存在变异:有的植株花序非常丰满、近乎球形,有的则相对稀疏。这种差异既可能来自遗传,也可能与树龄、营养、光照和花芽分化期气候有关。
2.2 花色与喉部斑纹
花色是 R. macabeanum 最容易被识别的性状之一。典型花色为柠檬黄色、奶油色至淡黄色,也有金黄色个体。喉部通常具有明显的紫色斑点、斑块或条纹。花蕾期可能先呈粉红色,随后转为奶油色,再开放为樱草黄色至较深的黄色。不同产地和个体间花色可从近奶油色到较饱和的黄色变化。紫色喉斑的大小、密度和边界在不同个体间也有变化,但“黄色系花冠+紫色喉部斑纹”是其最稳定的组合印象。
2.3 花器结构
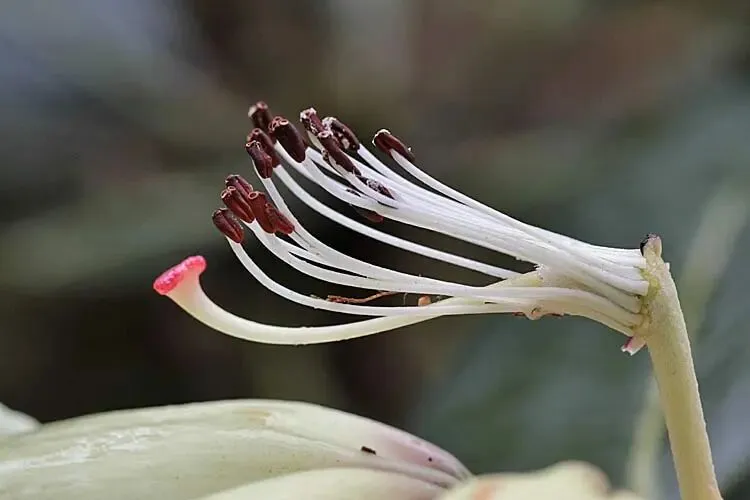
花器方面,雄蕊约 16 枚,花丝无毛,花药棕色,以顶端孔裂方式释放花粉;柱头大而呈红色或鲜红色,边缘波状;子房被白色或灰褐色绒毛。这些细节不仅具有分类意义,也影响杂交操作:较大的柱头和较明显的花器结构便于人工授粉,而花药孔裂意味着采集花粉时需要借助振动或切孔。其花序大、单花管状,也意味着花部性状在杂交后代中容易受到花冠长度、花径、喉斑和花色背景的复合影响。
2.4 花期
在栽培条件下,R. macabeanum 通常在春季早期至中期开花,约 5 月左右,花期可能与叶芽生长重叠 。有资料指出它比大多数大叶杜鹃开花更早。在野生状态下,有记录显示花期可从 3 月第一周开始,3 月最后一周达到高峰,4 月底结束;也有资料将其归为“早春至早春中期”。这种差异说明花期受海拔、纬度和当年气候强烈影响。园艺上,早花特性既是优势——早春景观效果好——也是风险——新生组织可能遭遇晚霜,尤其在其耐寒性受生长阶段影响的情况下。
三、叶部形态特点
3.1 叶形、尺寸与比例
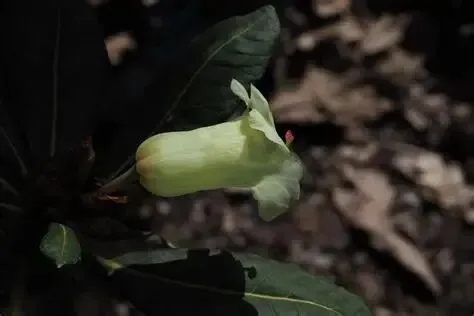
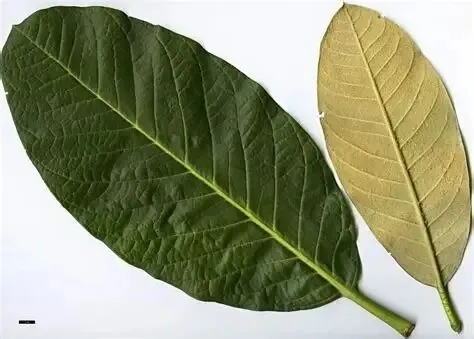
R. macabeanum 的叶片为宽卵形至宽椭圆形,文献记录范围大致为长 14–30 厘米、宽 9–20 厘米,另一组测量为 14–25 厘米 × 9–18.5 厘米,长度约为宽度的 1.3–1.8 倍;综合 。叶尖圆钝至微凹,基部楔形,叶柄长 2–2.5 厘米,圆形,略具翅,呈絮状绒毛状,侧生小叶呈三角形。这种“宽、厚、大、钝尖”的叶形与许多狭长叶杜鹃明显不同,是其大叶杜鹃身份的核心识别点。
3.2 叶面质地、叶脉与光泽
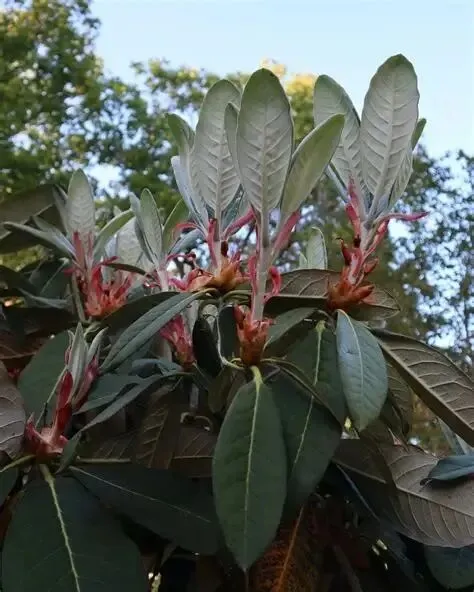
成熟叶片厚革质,深绿色,表面光滑,常具光泽或细纹,叶脉网状且凹陷,中脉显著,常呈黄色。叶面这种“深绿—凹陷脉—明显中肋”的组合,使叶片在近看时有很强的雕塑感。部分资料描述其叶面可有轻微光泽,部分个体则更偏哑光,这可能与栽培光照、叶龄和 叶背毛残留有关。幼叶初期覆盖浓密白色绒毛,随后逐渐脱落露出光滑叶面,但叶背绒毛通常持续 1–2 年或更久。
3.3 叶背
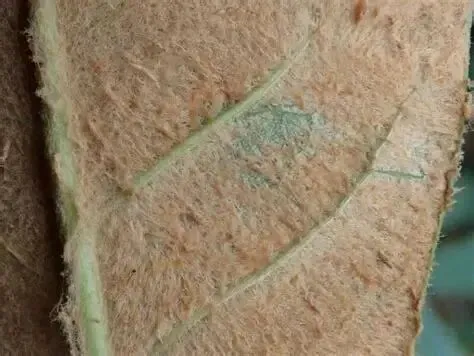
白色、灰白、黄褐至黑褐色叶背密被绒毛层是 R. macabeanum 最关键的叶部特征之一。其叶背毛通常分为两层:下层紧密、白色,上层松散,由轮状排列、部分分枝的毛组成,呈羊毛状、毡毛状或伏腺毛状。颜色方面,常见描述为灰白色至白色、浅黄褐色、灰褐色,部分个体随年龄增长可变深,甚至呈黑褐色 。这种颜色差异是 R. macabeanum 形态变异的重要部分,也可能与产地、叶龄和栽培环境有关。园艺鉴定时,不能仅凭“叶背是否白色”判断真伪,而应观察绒毛层次、毛的类型、叶柄和叶脉等综合特征。
3.4 叶柄、幼叶与叶背
叶柄长 2–2.5 厘米,圆形,略具翅,被絮状绒毛。幼叶白色 ,展开后叶面逐渐光滑,但叶背绒毛层可持续较长时间。这种“新叶白毛—老叶面光—叶背绒毛长存”的发育节奏,使其在春季新梢期具有很高的观赏价值,也意味着运输和栽培中应避免机械损伤叶背绒毛,否则会影响外观和抗逆性评估。
3.5 叶部变异
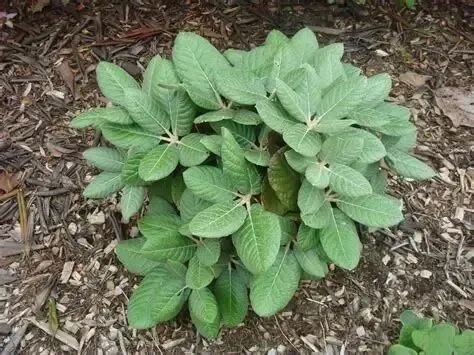
高山型R. macabeanum 的叶大小、叶形和叶背绒毛颜色变异显著。一般型可长成大树,叶片巨大;而 2003 年在 Mt. Saramati 山顶由 Steve Hootman 采集的高山型则表现为植株更紧凑、叶片更小、叶背毛更暗更厚,且更耐寒但要求极好排水。这一高山型说明,R. macabeanum 的“大叶”并非绝对,产地海拔和生态型会显著改变叶部表现。育种上,高山型可能是将耐寒性与紧凑株型引入大叶体系的重要资源,但其叶大小遗传贡献需要专门试验验证。
四、生长特点与栽培习性
4.1 植株形态与树体结构
R. macabeanum 是大型常绿灌木或小乔木,高可达 7–15 米(约 23–50 英尺),树冠密集,树干短,树皮粗糙,呈红褐色或褐色,易剥落;枝条扭曲,呈轮生排列。这种树体结构使其在适宜环境中具有强烈的“建筑感”,适合作为林下主景或大型杜鹃园中的骨架植物。其大型叶片与粗壮枝条也意味着成年植株需要较大的空间,不宜按小型灌木密植。
4.2 生长速度与苗期
R. macabeanum 被描述为“开花缓慢”,若新梢过早生长还可能遭遇霜害。种子播种后约 2–3 个月发芽,最长可达 1 年;幼苗长至约 6 英寸后可移栽,苗期需在酸性土中培育。有资料将种子发芽和早期生长阶段概括为约 6 个月,随后是 3–4 年营养生长阶段,再进入开花期,但该说法更接近一般性描述,与 R. macabeanum 实际 9–13 年开花记录并不完全一致。综合来看,其苗期并不算极快,前期需要耐心培育,成年后生长和开花表现才逐渐稳定。
4.3 土壤、光照与水分
R. macabeanum 喜酸性土壤、排水良好、富含有机质的环境,耐风、耐霜和一定程度的干旱,但在强烈直射阳光和高温干燥下并不理想。栽培上宜选择半阴、避风、空气湿度较高的位置。幼苗期需遮阴,播种时用良好泥炭土,保持湿润但不覆盖种子,置阴凉处。有资料指出,在炎热地区杜鹃花应避免强烈下午阳光以防叶片灼伤,虽为一般杜鹃栽培经验,但对大叶杜鹃尤其适用。因此,R. macabeanum 的“耐晒”不能与“耐热”混为一谈:它可以在有遮阴的温暖环境中生长,但不适合暴晒和干热。
4.4 海拔、生境与伴生植物
野生 R. macabeanum 生于海拔约 2400–2700 米(8000–9000 英尺)的山坡森林,另有记录为 2500–3000 米;。它常生于陡峭山坡森林中,与桦树、其他杜鹃(如 R. maddenii、R. elliottii)、矮竹、小檗等伴生 。这种生境说明它需要良好的空气湿度和排水,同时能忍受一定的风霜。栽培中若土壤黏重、排水不良,根系易受损,尤其高山型更要求“极好排水”。
4.5 繁殖与保护
R. macabeanum 的有性繁殖再生能力较差,种子发芽率低,幼苗存活率也不高;大多数杜鹃花营养繁殖速度慢,难以大规模繁殖。因此,离体繁殖(in vitro propagation)被提出作为快速繁殖和保护手段。园艺上,对于优良选系,推荐使用嫁接或离体繁殖苗,以保证开花性和株形,因为实生苗变异大。该物种因森林砍伐、滑坡和频繁森林火灾导致野生种群迅速减少,被列为濒危。保护与园艺利用之间需要平衡:优先使用人工繁殖材料,避免野生采挖。
五、开花龄
从种子到首次开花,直接观察数据9–10 年、13 年、15 年。现有资料没有给出经科学验证的“平均开花龄”,但有若干园艺观察数据。其一,有记录显示某些植株在播种后 9 或 10 年就开花,作者对此表示惊讶,说明这被视为较早的个案。其二,一位园艺者 1999 年播种,植株在 2012 年首次形成花蕾,即播种后约 13 年;另有 1991 年获得的幼苗到 2014 年已连续可靠开花 14 年。其三,在澳大利亚国家杜鹃园,R. macabeanum 的杂交种约 15 年开花。其四,一般杜鹃花属数据常被引用为 10–12 年,条件不理想时可长达 20 年;物种通常比杂交种更晚,杂交种可能 4–5 年开花,而物种可长达 20 年。
5.2 为什么没有“精确平均值”
爱丁堡皇家植物园(RBGE)自 2007 年起开展杜鹃花物候项目,监测 57 个物种、157 个种质的首次和盛花日期、叶片发育和结果,但监测重点并非“从播种到首次开花”的完整生命周期。因此,现有物候数据库不能直接回答“精确平均开花龄”。此外,R. macabeanum 的实生个体差异大,栽培地气候、光照、营养、嫁接与否、种子来源和高山型/一般型都会影响开花时间。把 9–10 年、13 年、15 年这些点数据简单平均并不科学。
5.3 合理的园艺判断
综合现有记录,R. macabeanum 从种子到首次开花通常落在约 10–15 年范围内:理想条件下可能 9–10 年,常见观察约 13 年,杂交后代或条件较差时可达 15 年甚至更久;一般杜鹃属“10–12 年”和“物种可达 20 年”的数据可作为上限参考。对育种者而言,这意味着不能用短期苗期试验评价其开花性状,必须建立长期观测圃;对园林应用而言,采用嫁接或离体繁殖的已选系可以缩短等待时间并保证开花一致性。
六、分布区域与生境
R. macabeanum 主要分布于印度东北部,具体包括曼尼普尔邦(Manipur)和那加兰邦(Nagaland),尤其是那加丘陵(Naga Hills)、Japfu/Japvo 山系、Barail Range、Ching Sow、Manipur 的 Siroi 山以及 Nagaland 的 Mt. Saramati 及周围山区。其海拔记录为 2400–2700 米、2500–3000 米或 8000–9500 英尺。它仅生长在那加山一带,被 Brahmaputra/Assam 平原与喜马拉雅雨林中的其他大叶杜鹃隔开,形成地理隔离。这种“低纬度但高海拔”的分布解释了为什么它看似来自温暖地区,却表现出令人惊讶的耐寒性。
该物种被列为濒危,原因包括森林砍伐、滑坡和频繁森林火灾。其分布区狭窄、种群稀少,且形态变异大但群体间可能相对同质。高山型在 Mt. Saramati 山顶被发现,叶更小、株型更紧凑、叶背毛更暗,更耐寒但需极好排水。这些产地信息对引种和育种非常重要:不同产地的耐寒性、叶大小和花可能不同,不能把某一栽培克隆的性状当作整个物种的固定属性。
七、耐热性
缺乏阈值,但可判断其偏好凉爽湿润
7.1 没有直接的最高温度阈值
在给定搜索结果中,没有关于 R. macabeanum 叶片、根系或活跃生长期的具体热损伤阈值记录。讨论杜鹃花耐热性的研究多集中在 R. hyperythrum、R. catawbiense、R. russatum、R. latoucheae、R. molle、R. discolor、R. pingianum 等物种,并未包含 R. macabeanum。因此,不能给出“可耐 35°C”或“超过 40°C 死亡”之类的确定数字。任何此类数字若无实验支持,都不应写入育种或栽培决策。
7.2 生态与栽培线索
从生态看,R. macabeanum 原生于高海拔、凉爽、湿润的山坡森林,栽培上偏好湿润温和气候,宜种植于有遮阴、避风的林地。有资料指出它比近亲更能忍受干旱,在较温暖湿润地区生长更快,但这并不等于耐极端高温。它可能适合“温暖但不干热、有空气湿度、半阴”的环境;在强烈下午阳光下,叶片可能灼伤,尤其大叶杜鹃的叶面积大、蒸腾负担高。因此,园艺上应优先考虑遮阴、通风、排水和水分稳定,而不是追求“耐热”。
7.3 与耐热育种的关系
在杜鹃花耐热育种中,关键亲本通常是 R. hyperythrum、R. yakushimanum、R. simsii 等,而非 R. macabeanum。有研究指出耐热性可通过杂交转移,F1 常可从种子亲本继承部分耐热性,但 R. macabeanum 并未被列为耐热亲本。因此,用 R. macabeanum 做亲本时,不应期待其后代自动获得耐热优势;若目标是在温暖地区栽培,应把耐热亲本和后代高温筛选纳入独立育种程序。
7.4 建议的试验设计
若需确定其耐热上限,应进行控制环境试验:设置 25/20°C、30/25°C、35/28°C、40/32°C 等昼夜温度处理,测定光合速率、Fv/Fm、膜透性、丙二醛、抗氧化酶、脯氨酸和叶片灼伤等级,并区分根系与叶片、幼苗与成株、一般型与高山型。现有一般杜鹃研究显示,部分物种在 40°C 时光合显著下降甚至接近零,高温可导致膜流动性受损和活性氧积累。这些方法可作为 R. macabeanum 热阈值研究的模板,但不能直接替代其自身数据。
八、耐寒性
总体较强但受状态影响,存在数据差异
8.1 评级与温度范围
R. macabeanum 的耐寒性常见评级为 H3–H4,约 -15°C 至 -18°C;RHS 评级有记录为 H4,通常对应 -10°C 至 -15°C;也有资料给出 10°F,即 -12°C。另有记录提到 -21°C 至 -25°C 下的表现,但可能伴随花芽受损。这些差异说明“耐寒性”不是单一数字:叶片、枝条、花芽和根系的耐受性不同,植株在秋季硬化程度、风力、排水、积雪覆盖都会影响实际表现。
8.2 “令人惊讶的耐寒”与“并非最耐寒”
多数资料强调,尽管 R. macabeanum 原产低纬度(约 25°N),它却比许多大叶杜鹃更耐寒,能忍受风、霜和一定干旱。有资料称其比 R. sinogrande 更成功,在太平洋西北地区生长良好。但另有园艺者指出,它不是最耐寒的物种之一,若新梢过早萌发,连续两年霜冻可导致致命结果。因此,其耐寒性应表述为“相对较强,但高度依赖生长状态和栽培条件”,不能简单宣传为“耐寒大叶杜鹃”。
8.3 高山型与一般型
高山型 R. macabeanum 植株更紧凑、叶更小、叶背毛更暗,且更耐寒,但要求极好排水。这提示育种中可利用高山型作为耐寒资源,但必须注意其叶大小和株型可能与一般型大叶特征不同。若目标是培育“大叶+耐寒”后代,可能需要在高山型和一般型之间做平衡选择,或通过回交恢复叶大小。
8.4 与杂交后代耐寒性的关系
已记录的 ‘King Size’ 使用耐寒的 R. brachycarpum 与 R. macabeanum 杂交,再回交 R. macabeanum,育成叶片巨大、耐寒性提升至约 -18°C 的品种。这说明 R. macabeanum 的大叶性状可以与耐寒亲本结合,但需要多代选择。另一方面,‘Sinogrande × macabeanum’ 的后代花朵在低于 10°F(-12°C)时易受冻害,说明其花部耐寒性可能较弱。一般杜鹃杂交规律是:耐寒与不耐寒亲本杂交,F1 常为中间型且较一致;F2、回交后代变异增大,耐寒性由多基因加性效应控制。因此,用 R. macabeanum 做亲本时,F1 不应期待超亲耐寒,回交和后续选择才是关键。
九、杂交遗传性状与亲本价值
9.1 为什么 R. macabeanum 被用于杂交
R. macabeanum 的育种价值集中在四点:第一,巨大、厚革质、叶背有绒毛的叶片,可增强大叶杜鹃的“热带雨林感”;第二,黄色至奶油色花冠和紫色喉斑,可为黄色系育种提供亲本;第三,高大的小乔木株型,可提供建筑感;第四,相对容易杂交,园艺中常见杂交种而非纯种。有资料将其列为“真正的大叶品种”之一,作为花粉供体具有 -15 至 -20°C 的冷耐受潜力。其高山型用于培育小型、紧凑品种的特别亲本。
9.2 已记录的杂交组合与品种
现有资料中可确认或较明确记录的组合包括:
1。‘King Size’:由瑞典人 Bengt Karlsson 培育,系谱为 (R. brachycarpum × R. macabeanum) × R. macabeanum。叶片可达 30 厘米长、13 厘米宽,深绿色、有光泽,叶脉明显,具轻微白色绒毛。该品种是“用耐寒亲本 + 回交大叶亲本”的典型策略:既保留大叶,又提升耐寒性。
2。‘Queen Size’:由 R. brachycarpum 与 R. macabeanum 杂交而来,叶片长达约 25 厘米,同样体现大叶性状。该组合说明 R. macabeanum 的大叶性状在与耐寒亲本杂交后仍可显著表达。
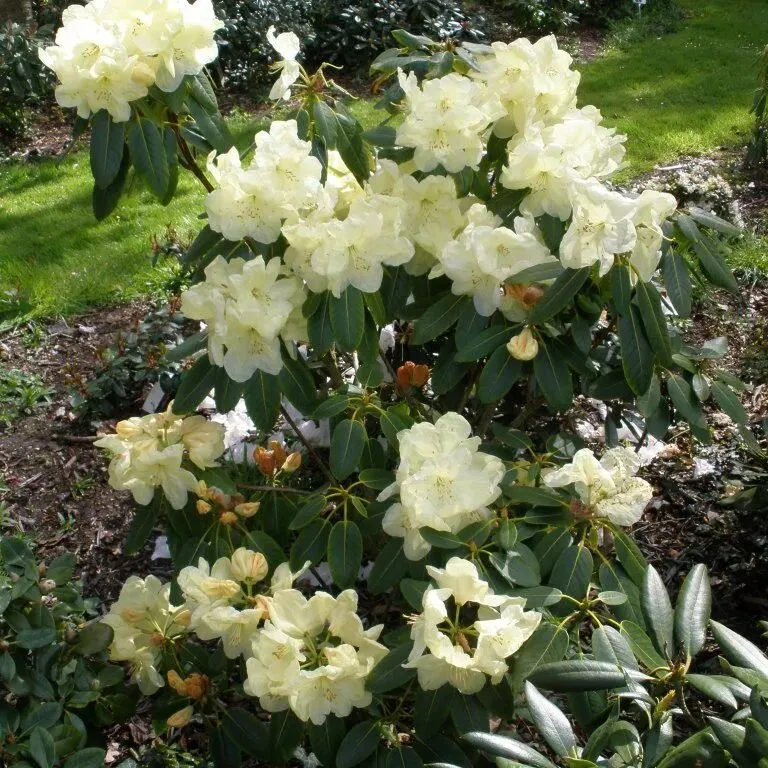
3。‘Big Mac’:有记录称其为 R. labradoricum ‘White’(原文可能有误)与 R. macabeanum 的杂交,但亲本表述存在不确定性。这提示部分早期杂交记录的名称和亲本需要回到注册数据库核实,不能仅凭园艺文章断言。
4。‘Mundai’ × R. macabeanum:后代产生大型蓬松花序,约 20 朵花,持久开放;花色范围从奶油色、黄色到粉色,带或不带基部斑点或背部火焰斑。这是少数直接描述 R. macabeanum 杂交后代花部变异的记录,说明黄色、奶油色和斑点性状在组合中可发生分离或重组。
5。R. magnificum × R. macabeanum 的杂交种,幼叶非常引人注目,深绿色,长达约 7 厘米,背面有银褐色绒毛。该记录说明 R. macabeanum 可将其叶背 indumentum 特征传递给后代,至少在幼叶期表现明显。
6。‘Arizelum × macabeanum’:1951 年发布,以叶片为主的品种,生长健壮;但有描述指出在其叶片上没有明显看到 R. macabeanum 的影响。这可能是因为 R. arizelum 本身叶大,或该组合中 R. macabeanum 的叶形基因表达被掩盖。
7。‘Sinogrande × macabeanum’:1955 年发布,后代拥有“极好的叶子”,但花色令人失望,R. macabeanum 的黄色特征几乎没有显现。该组合是“叶性状可能相加、花色却不一定显现”的典型例子。
8。‘Unique’ 相关注册:有资料提到 R. macabeanum × ‘Unique’ 的注册信息,但名称逻辑存在歧义,需要回到新西兰杜鹃花协会等注册数据库确认。
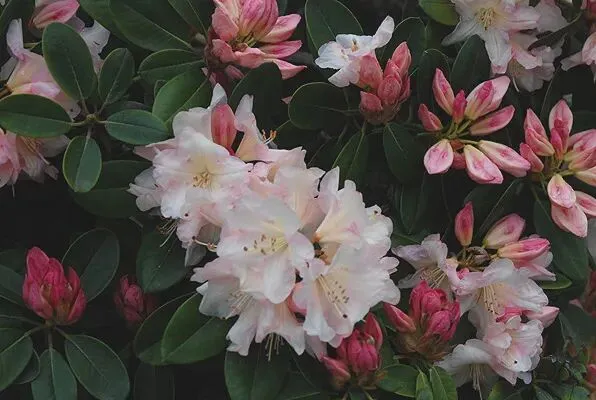
9。W081 大叶实生苗:被描述为 “Large leafed seedlings”,即大叶实生苗,不是正式命名品种,但说明 R. macabeanum 的实生后代中可出现大叶类型。
此外,R. macabeanum 常与 R. sinogrande 杂交,园艺中常见杂交种而非纯种。有苏格兰杜鹃花协会的杂交实验观察到后代继承大叶和新的顶芽生长能力。这些记录共同说明:R. macabeanum 是一个“叶性状贡献明显、花性状贡献不稳定、耐寒性需搭配耐寒亲本”的亲本。
9.3 后代叶部特征的遗传表现
从现有记录看,R. macabeanum 的叶大小在杂交后代中通常有较强影响,尤其是当它作为回交亲本时。‘King Size’ 叶片达 30 × 13 厘米,明显继承了大叶特征;‘Queen Size’ 叶片约 25 厘米,也表现大叶;W081 大叶实生苗和苏格兰杂交实验后代也继承大叶和较强生长势。这说明叶大小可能是多基因加性性状,F1 常为中间型,回交 R. macabeanum 可提高大叶个体比例。但叶大小并非完全由 R. macabeanum 决定:‘Arizelum × macabeanum’ 没有明显 R. macabeanum 叶形影响,‘Sinogrande × macabeanum’ 的“极好叶子”也可能主要来自 R. sinogrande 本身的大叶背景。因此,育种上不能把“大叶”简单归因于单一亲本,而应通过组合和后代选择实现。
叶背绒毛的遗传也有线索。‘Jack Anderson’ 幼叶背面有银褐色绒毛,说明 R. macabeanum 的叶背绒毛可在后代中表达,但颜色、厚度和持久性可能受另一亲本影响。R. macabeanum 本身的叶背毛可从白色、灰白、黄褐到黑褐色变化,因此后代叶背颜色可能出现广泛分离。若育种目标是“白背大叶”,应选择 叶背毛稳定白色的亲本,并在 F1 或回交后代中筛选。
9.4 后代花部特征的遗传表现
花色遗传是 R. macabeanum 杂交中最不确定的部分。R. macabeanum 本身为黄色至奶油色,喉部有紫色斑纹。但在 ‘Sinogrande × macabeanum’ 中,后代花色令人失望,R. macabeanum 的黄色几乎没有显现;‘Arizelum × macabeanum’ 后代为大型白色花,未见黄色影响。这说明黄色在這些组合中并未表现为简单显性,可能受类胡萝卜素,黄酮代谢、花色背景和基因互作影响。相反,‘Mundai’ × R. macabeanum 后代出现奶油色、黄色和粉色,带或不带基部斑点或背部火焰斑,说明在与某些亲本组合时,黄色和斑点性状可以重组表达。‘King Size’ 的描述主要强调叶片,未提供花色细节,因此不能据此判断其花色遗传。
紫色喉斑的遗传同样复杂。R. macabeanum 的紫色斑点/斑块是其标志性特征;但在 ‘Sinogrande × macabeanum’ 和 ‘Arizelum × macabeanum’ 中未见明显黄色或斑点描述。‘Mundai’ 杂交后代则保留“带或不带基部斑点或背部火焰斑”的变异。这表明喉斑可能受多个位点控制,且表达受花冠底色和花青素分布影响。育种上若想稳定保留紫斑,应选择斑点明显且花色背景对比强的亲本,并在多个组合中测试。
花序大小和花数方面,‘Mundai’ × R. macabeanum 后代产生大型蓬松花序,约 20 朵,持久开放,说明 R. macabeanum 的大花序性状可以与‘Mundai’的花部结构组合,产生观赏性较强的后代。R. macabeanum 本身每束 12–30 朵;综合 其后代花数可能落在中间范围,也可能出现超亲个体,但缺乏系统计数数据。
9.5 后代耐寒性的遗传表现
R. macabeanum 自身耐寒性中等偏强,但并非最耐寒;其杂交后代的耐寒性主要取决于另一亲本和回交策略。‘King Size’ 使用极耐寒的 R. brachycarpum,再回交 R. macabeanum,最终获得大叶且耐寒性提升至约 -18°C 的品种。这说明 R. macabeanum 的大叶性状与耐寒性可以在多代选择中结合。‘Sinogrande × macabeanum’ 的后代花朵在低于 10°F(-12°C)时易受冻害,说明其花部耐寒性可能较弱,或该组合未充分引入耐寒性。一般规律是:耐寒与不耐寒亲本杂交,F1 通常为中间型;F2、回交后代变异增大,耐寒性由多基因加性效应控制,使用高耐寒亲本是最有效的提高途径。因此,用 R. macabeanum 做亲本时,若目标为耐寒,应优先与 R. brachycarpum、R. catawbiense 等耐寒亲本杂交,并在 F1 或回交后代中选择;回交 R. macabeanum 可恢复大叶,但可能稀释耐寒性,需要平衡。
9.6 后代耐热性的遗传表现现有资料中没有 R. macabeanum 杂交后代耐热性的直接数据。耐热育种的核心亲本通常是 R. hyperythrum、R. simsii、R. yakushimanum 等。有研究指出耐热性可通过杂交转移,F1 常可从种子亲本继承部分耐热性,但没有证据表明 R. macabeanum 具有这种能力。相反,R. macabeanum 偏好凉爽湿润、半阴环境其后代很可能继承这种生态偏好。因此,不能假定其杂交后代耐热;若要在温暖地区栽培,应把耐热亲本和高温筛选作为独立育种目标,或使用 R. macabeanum 作为大叶/黄花供体,再与耐热种进行复合杂交。
十、综合育种评价与使用策略
10.1 作为大叶亲本
R. macabeanum 的最大育种价值是叶大小、叶质和叶背绒毛。‘King Size’、‘Queen Size’、W081 和苏格兰杂交实验都显示其后代可出现大叶、厚叶和较强生长势。若目标是“大叶+耐寒”,建议采用 耐寒亲本 × R. macabeanum,再根据叶大小和耐寒性进行回交或 F2 选择;‘King Size’ 的 (brachycarpum × macabeanum) × macabeanum 就是成功范例。但回交比例不宜过高,否则耐寒性可能下降;应通过家系选择保留大叶且耐寒的个体。
10.2 作为花色亲本
R. macabeanum 的黄色至奶油色和紫色喉斑是重要花部资源,但黄色并不稳定遗传。‘Sinogrande × macabeanum’ 和 ‘Arizelum × macabeanum’ 都没有明显黄色表现,说明其黄色基因可能被掩盖或需特定组合。‘Mundai’ × R. macabeanum 后代出现奶油、黄、粉和斑点变异,提示与某些亲本组合时花部变异更丰富。育种上应多做组合、加大 F1 群体,并在不同光温条件下评价花色稳定性;不能仅凭单组合判断其黄色遗传力。
10.3 作为耐寒亲本
R. macabeanum 自身耐寒性为中等偏强,H3–H4,约 -15 至 -18°C,部分记录 -12°C,高山型更耐寒。但它不是最耐寒物种,新梢早发易受霜害。因此,它更适合作为“耐寒性中等偏强的大叶亲本”,而不是极端耐寒亲本。与 R. brachycarpum 等耐寒种杂交可提升后代耐寒性;与 R. sinogrande 等较娇嫩大叶种杂交,后代花部耐寒性可能不足。
10.4 作为耐热亲本
不建议把 R. macabeanum 作为耐热育种的核心亲本。它没有耐热阈值数据,生态上偏好凉爽湿润,且未被耐热育种文献列为主要耐热资源。若需要耐热大叶杜鹃,应优先使用 R. hyperythrum、R. simsii 等耐热资源,或将 R. macabeanum 作为大叶/黄花供体进行有限回交,并对后代进行高温筛选。
10.5 繁殖与商品化
R. macabeanum 实生苗变异大,优良性状难以固定;园艺上推荐嫁接或离体繁殖苗,以保证开花性和株形。其种子发芽慢且幼苗存活率低,离体繁殖被提出作为保护和大规模繁殖手段。商品化时应明确标注产地、是否高山型、耐寒等级和叶背绒毛特征,避免把实生苗当作无性系销售。
十一、研究空白与未来方向
第一,开花龄缺乏标准化数据。现有 9–10 年、13 年、15 年均为零散观察,RBGE 物候项目监测开花日期而非播种到开花周期。未来应建立多地点、多种源、多世代的播种—开花记录,统计中位数、范围和遗传力。
第二,耐热阈值完全缺失。没有 R. macabeanum 叶片、根系或生殖阶段的热损伤温度数据。应开展控制环境试验,测定光合、膜稳定性、抗氧化系统和花芽发育,建立温度—时间—伤害模型。
第三,杂交后代性状分离缺乏系统记录。现有资料多为园艺描述,而非正式育种记录;叶大小、花色、喉斑、耐寒性和耐热性的分离比、遗传力和配合力尚不明确。未来应建立谱系清楚的杂交群体,使用图像测量叶面积、花色色差仪、喉斑面积和抗逆性指标,进行 QTL/ GWAS 分析。
第四,高山型与一般型的遗传差异需要研究。高山型更紧凑、叶小、叶背绒毛暗、耐寒但需排水,其与一般型杂交后代的叶大小和耐寒性分离规律尚不清楚。若能把高山型耐寒性与一般型大叶结合,可能培育出更适合温带园林的品种。
第五,保护与利用平衡。R. macabeanum 为濒危物种,野生采种应严格受控。应优先利用植物园、繁殖圃和离体保存材料,建立核心种质库,避免因园艺需求加剧野生种群压力。
十二、结论
R. macabeanum 是杜鹃花属中极具辨识度的大叶杜鹃:叶片宽大、厚革质、叶背具双层绒毛,花色柠檬黄至奶油黄甚至金黄、喉部紫斑,花序多花,植株可长成 7–15 米小乔木,也有侏儒型高山种。它原产印度东北部 Manipur 和 Nagaland 的那加丘陵,海拔约 2400–3000 米,被 Brahmaputra 平原与其他喜马拉雅大叶杜鹃隔离,因森林砍伐和火灾而濒危。栽培上喜酸性、排水良好、湿润温和、半阴避风环境,耐寒性中等偏强,常评 H3–H4,约 -15 至 -18°C,亦有 -12°C 记录;耐热性缺乏具体阈值,生态上更偏凉爽湿润,不宜暴晒干热。从种子到首次开花通常约 10–15 年,理想条件可 9–10 年,常见约 13 年,杂交后代可约 15 年,但无标准化平均值。作为亲本,它最适合提供大叶、黄/奶油花色和紫色喉斑;‘King Size’、‘Queen Size’、‘Mundai’ 杂交、‘Jack Anderson’、‘Sinogrande × macabeanum’、‘Arizelum × macabeanum’ 等记录显示其后代叶大小可显著表达,但花色遗传不稳定,黄色并不总是显现,紫色斑点可保留也可减弱;耐寒性可通过与 R. brachycarpum 等耐寒亲本杂交改善,回交 R. macabeanum 可恢复大叶但可能稀释耐寒性;耐热性没有证据表明其具有优势,不能假定后代耐热。因此,R. macabeanum 应被定位为“大叶—黄花—紫斑—建筑感株型”的特色亲本,而不是耐热或极端耐寒亲本;育种中应结合耐寒/耐热亲本、回交策略、无性繁殖和区域试验,并在保护前提下利用其遗传资源。