
 研报速递
出处:Paez HG, Ferrandi PJ, Pitzer CR, Mohamed JS, Alway SE. Loss of NOR-1 represses muscle metabolism through mTORC1-mediated signaling and mitochondrial gene expression in C2C12 myotubes. FASEB J.
作者介绍:
Abstract
摘要
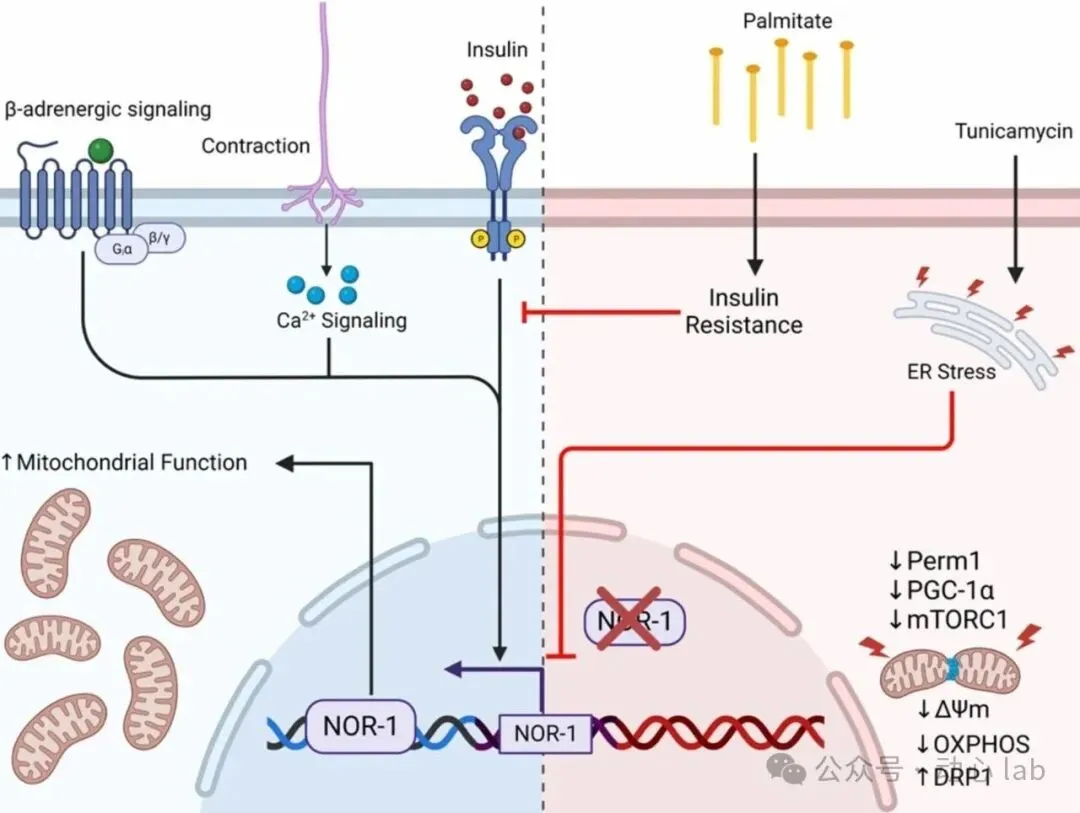
NR4A 孤儿核受体 NOR-1 的基因表达在肥胖状态下以及人体骨骼肌废用期间下降。已有充分证据表明,NOR-1 对有氧和抗阻运动均具有高度反应性,且其过表达伴随多种代谢获益。然而,NOR-1 缺失是否促成骨骼肌中可能导致胰岛素抵抗的异常代谢信号尚不明确。本研究旨在阐明 NOR-1 缺乏对 C2C12 细胞代谢信号的影响。采用 qPCR 与 RNA 测序(RNA-Seq)生物信息学分析,确定 siRNA 介导的 NOR-1 敲低后 C2C12 肌管的基因表达变化。RNA-Seq 数据鉴定出多种受 NOR-1 调节的代谢相关靶标,并提示NOR-1 可通过不依赖 Akt 的机制调节 mTORC1 信号。此外,通路分析显示,NOR-1敲低扰动了与胰岛素抵抗和胰岛素敏感性有关的通路。上述结果提示,骨骼肌 NOR-1 缺乏可能导致与代谢性疾病相一致的代谢信号改变。我们推测,提高 NOR-1 的策略可能有助于抵消身体活动不足、肥胖和 2 型糖尿病对线粒体及肌肉代谢的不利影响。
Introduction
前言
营养过剩与身体活动不足促发代谢性疾病,导致骨骼肌等重要代谢组织中的细胞信号失衡。肥胖和 2 型糖尿病的后果形成易发生功能障碍的生理状态,使个体更容易出现失能和多病共存。骨骼肌是肥胖和 2 型糖尿病等代谢受损状态下主要发生功能缺陷的器官。肌量和力量下降与多种病理状态的严重程度及死亡风险相关,包括常与 2 型糖尿病并存的恶病质和肌少症。¹,²骨骼肌是餐后胰岛素刺激葡萄糖摄取的主要器官,也是全身代谢率的重要贡献者,因此对整体健康不可或缺。
代谢扰动会影响肌量,³提示以线粒体代谢为靶点的策略可能有效缓解或逆转肥胖⁴(包括肌少性肥胖)、⁵2 型糖尿病引起的肌肉萎缩³以及癌症恶病质中的线粒体功能障碍。⁶,⁷运动是改善疾病状态下肌肉代谢健康的重要干预,⁸,⁹但部分患者因已有合并症而无法进行较剧烈运动。因此,鉴定受运动调节的分子靶标对开发有效治疗方法至关重要。
一个潜在候选分子是神经元来源孤儿受体 1(neuron-derived orphan receptor 1,NR4A3/NOR-1)。它属于 NR4A 孤儿核受体亚家族,与神经元来源克隆 77(NR4A1/NUR77)和核受体相关蛋白 1(NR4A2/NURR1)同属该家族。NR4A 核受体可响应多种刺激,包括促有丝分裂及应激相关信号。¹⁰研究发现,骨骼肌 NOR-1 表达在肌肉活动不足及肥胖、糖尿病临床前模型中下降。¹¹,¹²骨骼肌中过表达 NOR-1 的转基因小鼠具有更高的氧化代谢基因表达、更大的肌量、向氧化型肌纤维转变的表型以及较少的脂肪。¹³
尽管 NOR-1 过表达可重现运动的多种获益,但 2 型糖尿病和肥胖状态下的 NOR-1 缺乏是否促成骨骼肌代谢功能障碍,仍不明确;骨骼肌中已知的 NOR-1 转录靶标也很少。本研究旨在表征NOR-1 缺乏对 C2C12 肌管代谢相关基因表达及合成代谢信号的影响。我们假设,NOR-1 敲低(knockdown,K.D.)会降低线粒体相关基因表达并抑制 mTORC1 信号。利用 siRNA 在 C2C12 肌管中敲低 NOR-1,再以 RNA-Seq 分析转录改变,我们发现 NOR-1 缺乏会对若干重要肌肉代谢调节因子的基因表达产生不利影响。
Results
研究结果
01|棕榈酸与衣霉素处理降低 NOR-1 表达
已有研究报道,在肥胖和2 型糖尿病遗传模型中,骨骼肌 NOR-1 和 NUR77 表达下降,¹¹提示致肥胖的细胞环境可能负向调节 NR4A 表达。NR4A 核受体在结构上高度同源,并存在功能冗余及相似上游调控;但除运动以外的因素如何调节其骨骼肌表达,尚不清楚,肥胖骨骼肌中的 NR4A 改变是否由脂毒性引起也未确定。
为检验脂质诱导胰岛素抵抗是否改变NR4A 表达,我们用500 μM 棕榈酸或 BSA 对照孵育 C2C12 肌管 16 h,再以胰岛素刺激。棕榈酸使胰岛素刺激的 Akt 磷酸化下降约 45%(图 1A;同组泳道为重复样本),并使应激反应性假激酶 TRB3 基因表达提高 14 倍(图 1B)。NUR77 表达在棕榈酸处理后升高,且在棕榈酸组经胰岛素刺激后进一步显著升高,在 BSA 组则无此反应(图 1C)。NURR1 对胰岛素无明显反应,但经棕榈酸处理后升高约 5.5 倍(图 1D)。
与上述两者相反,棕榈酸使NOR-1 基础表达显著降低约 40%(图 1E)。胰岛素可提高对照细胞中的 NOR-1 表达,却未能在棕榈酸处理细胞中诱导其上调。因此,棕榈酸诱导的胰岛素抵抗降低 NOR-1 基础表达,并消除其胰岛素刺激反应,而其他 NR4A 成员的表达在该状态下升高。
棕榈酸脂毒性常伴随ROS 增加及 ER 应激,两者均可能改变 NR4A 表达。用 250 或 500 μM H₂O₂ 处理肌管 16 h,TRB3 呈剂量依赖性升高(图 1F)。H₂O₂ 未显著改变 NOR-1 或 NUR77,却显著降低 NURR1表达(图 1G)。随后用不同剂量衣霉素诱导 ER 应激,ATF4 和 TRB3 均显著升高(图 1H);NOR-1 与 NUR77 在所有衣霉素剂量下均受抑制,而 NURR1 在较高剂量下升高(图1I)。
这些结果表明,NOR-1在棕榈酸诱导胰岛素抵抗后失去胰岛素反应性,且可被 ER 应激显著抑制;在本研究 H₂O₂ 氧化应激条件下则未下降。NR4A 家族成员在脂毒性、ER 应激和氧化应激中的调节方向不同,提示不同细胞应激下可能存在代偿作用。
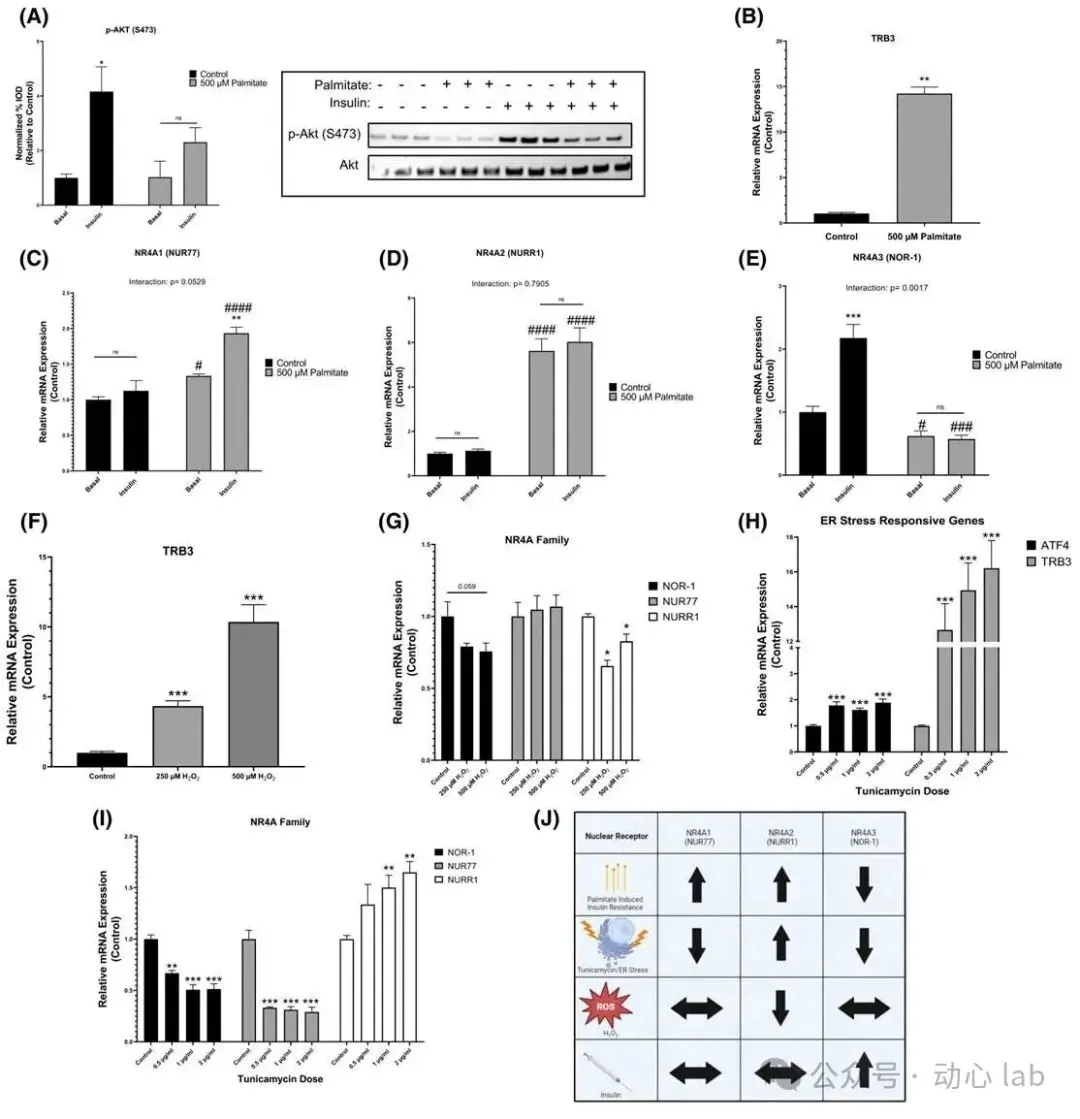
图 1|细胞应激因素对 NR4A 核受体基因表达的调控。(A)棕榈酸处理削弱 C2C12 肌管胰岛素刺激后的 Akt 磷酸化,同组泳道代表重复样本。(B)棕榈酸提高 TRB3 表达。(C–E)胰岛素及棕榈酸诱导胰岛素抵抗对 NR4A 家族的影响不同。(F)H₂O₂ 暴露提高 TRB3。(G)H₂O₂ 抑制 NURR1,但不抑制 NOR-1 或 NUR77。(H)衣霉素提高 ATF4、TRB3,提示 ER 应激反应通路被诱导。(I)衣霉素对 NR4A 家族成员的调节方向不同。(J)细胞应激状态下 NR4A 表达变化示意图。qPCR 以 GAPDH 为内参。均值±SEM;单因素或双因素方差分析及 Tukey 事后检验;每组 n=5–6。*p<0.05,**p<0.01,***p<0.001,表示组内比较;#p<0.05,##p<0.01,###p<0.001,表示相应组间比较。
02|NOR-1 敲低损害 C2C12 肌管的线粒体状态
胰岛素抵抗进展常伴随线粒体功能障碍,部分涉及线粒体网络重塑和脂肪酸代谢异常;¹⁷–¹⁹肥胖也与线粒体含量和功能下降有关。²⁰–²²为检验 NOR-1 缺乏是否改变线粒体相关基因表达,我们用对照或靶向NOR-1 的 siRNA处理已分化 C2C12 肌管(图 2),使 NOR-1 mRNA 下降超过 90%(图 2A)。与既往 NOR-1 缺乏可降低脂肪酸氧化(FAO)和线粒体能量生成的报道一致,²³CPT1β、CKMT2、PGC-1α 及 TFAM 基因表达均显著下降(图2B)。
尽管如此,mtDNA:nDNA比值并未下降(图 2C),NUR77 与 NURR1 表达也未改变(图 2D)。NOR-1 敲低使多种重要代谢基因表达改变(图 2E)。已知 NOR-1 过表达转基因动物中 MEF2C 表达升高,²⁴可能促进氧化代谢基因表达;令人意外的是,本研究敲低 NOR-1 后 MEF2C mRNA 也显著升高(图 2E)。
Ⅱa 类组蛋白去乙酰化酶 HDAC4 可抑制 MEF2 介导的转录,²⁵而 HDAC4 磷酸化有助于其定位于细胞质。²⁶因此我们进一步测量 HDAC4 磷酸化,发现其有下降趋势但未达显著性(p=0.079;图 2F)。这说明代谢基因下降不能归因于 MEF2C 表达降低。线粒体电子传递系统复合物Ⅰ至Ⅳ的蛋白丰度下降,但 VDAC 与 TOM20 未改变(图 2G)。作者据此认为 NOR-1 缺乏可能并不直接改变线粒体数量或体积,而可能降低单位线粒体的氧化能力。
高脂质暴露与肌管线粒体分裂及膜去极化有关。¹⁷我们因此测量融合/分裂调节因子 MFN2 和 DRP1,发现 MFN2 mRNA 显著降低,而 DRP1 mRNA 升高(图 2H),DRP1 蛋白也显著增加(图 2I)。进一步采用 JC-1 染色,NOR-1 敲低肌管相对于对照表现出红/绿荧光比下降及更多绿色单体荧光,提示线粒体膜电位显著降低(图 2J)。
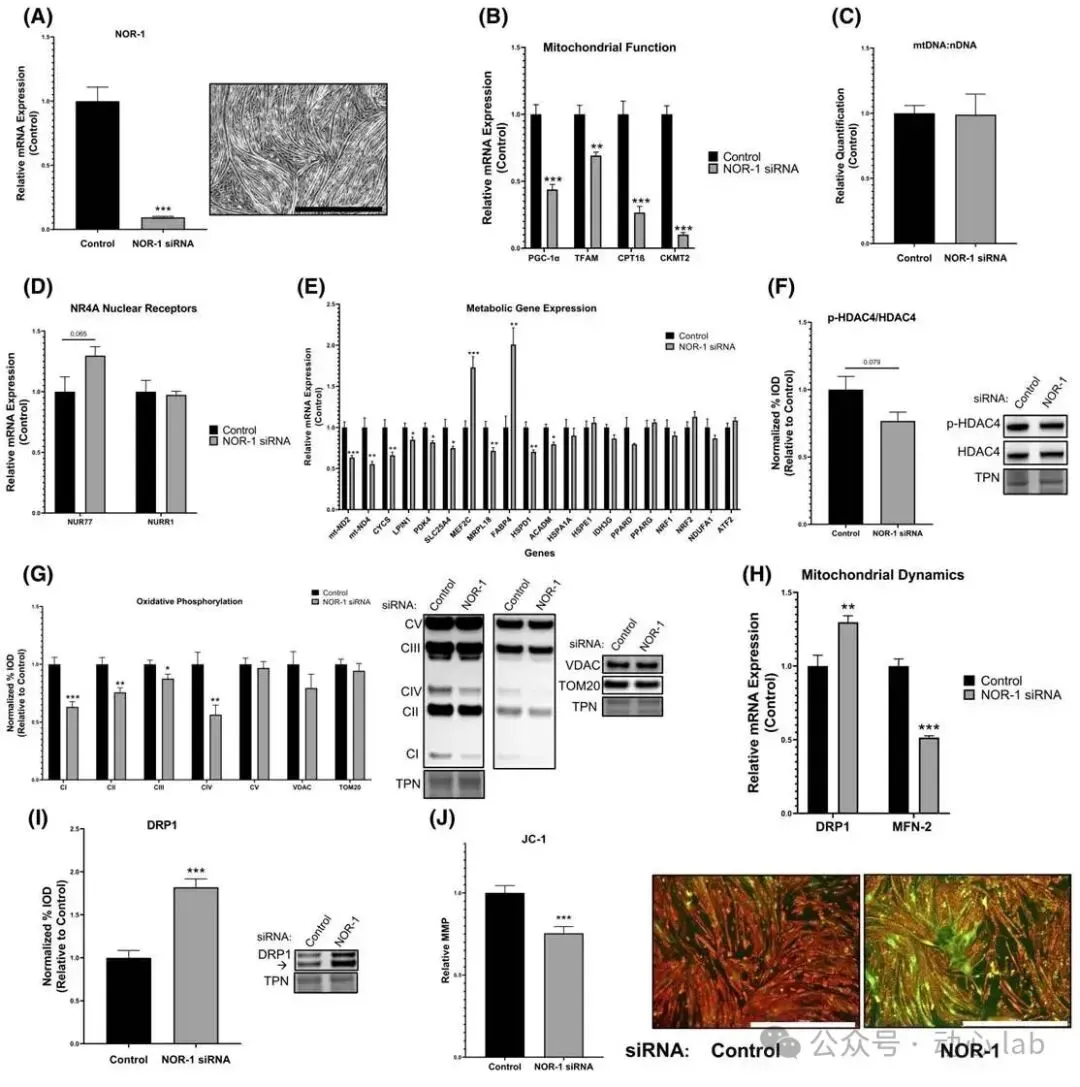
图 2|C2C12肌管NOR-1 敲低抑制线粒体相关基因表达。(A)先诱导肌母细胞分化,再以 siRNA 转染,使 NOR-1 mRNA 下降超过 90%;比例尺1000 μm。(B)线粒体功能调节因子 PGC-1α、TFAM,脂肪酸氧化相关 CPT1β 及能量生成相关 CKMT2 表达下降。(C)mtDNA:nDNA 比值不变。(D)其他 NR4A 成员未出现表达代偿。(E)多种代谢重要基因改变。(F)HDAC4 磷酸化未达显著变化。(G)电子传递系统复合物蛋白丰度下降,图中展示较高与较低曝光免疫印迹。(H)线粒体动力学效应因子的基因表达及(I)蛋白丰度改变。(J)线粒体膜电位(MMP)显著下降。qPCR 以 β-actin 为内参,免疫印迹按总蛋白(TPN)归一化。均值±SEM;非配对 t 检验;每组 n=5–10。*p<0.05,**p<0.01,***p<0.001,相对于对照。
03|NOR-1 敲低降低肌球蛋白重链表达与 mTORC1 信号
骨骼肌 NOR-1 过表达转基因动物具有肌球蛋白重链表达改变、更高耐力与肌肉肥大,²⁴,²⁷而肌细胞 NOR-1 增加与较高胰岛素敏感性相关,²⁸,²⁹提示其参与代谢健康和合成代谢信号调节。NOR-1敲低降低了肌管Ⅰ、ⅡA、ⅡX、ⅡB 型肌球蛋白的基因表达;胚胎型显著下降,围产期型则无显著变化(图 3A)。肌钙蛋白 TNNI1、TNNI2 也显著降低(图 3B),说明 NOR-1 对重要收缩相关基因的表达具有作用。
尽管肌球蛋白重链mRNA 改变较大,成熟肌管 siRNA 处理后的总肌球蛋白重链蛋白丰度(包括全部亚型)下降未达显著性(补充图 S4A)。为检验合成代谢信号及萎缩相关基因,进一步发现 FBXO32 表达有幅度较小但显著的升高(图3C)。尽管 Akt Thr308 磷酸化增加,mTOR 及下游 p70S6K、S6 的磷酸化均显著下降(图 3D)。Akt、mTOR、Rictor、p70S6K、S6 的总蛋白含量未见显著差异(补充图S1)。ATF4 与 TRB3 表达略有升高(图 3E)。
mTORC1 受多种因子负向调节,其中包括亮氨酸敏感的代谢调节蛋白 Sestrin2。NOR-1 敲低使 Sestrin2 基因表达升高 60%(图 3F)。为检验 mTORC1 抑制是否来自亮氨酸合成代谢敏感性下降,我们在 MEM 中无血清饥饿肌管过夜,再用 2 mM 亮氨酸刺激。过夜无血清处理使敲低组和对照组 mTORC1 信号恢复至相近水平;而敲低组经亮氨酸刺激 2 h 后 S6 磷酸化更高,提示对亮氨酸的反应增强(补充图 S2)。作者据此认为,NOR-1 缺失所伴随的 mTORC1 信号下降通过不依赖 Akt、也不依赖 Sestrin2 的信号发生。
NOR-1 敲低还使 FGF21 基因表达下降约 50%(图 3F)。禁食时肝脏 FGF21 可由 NUR77 经启动子中的神经生长因子诱导 B 反应元件(NBRE)调节。³⁰NR4A 家族 DNA 结合域高度同源,可通过启动子内的NBRE 序列 AAAGGTCA 调节转录,具有较强功能冗余。因此,NOR-1也可能调节骨骼肌细胞 FGF21。总之,NOR-1 敲低伴随 C2C12 肌管 mTORC1 信号、肌球蛋白重链基因表达和FGF21 表达下降。
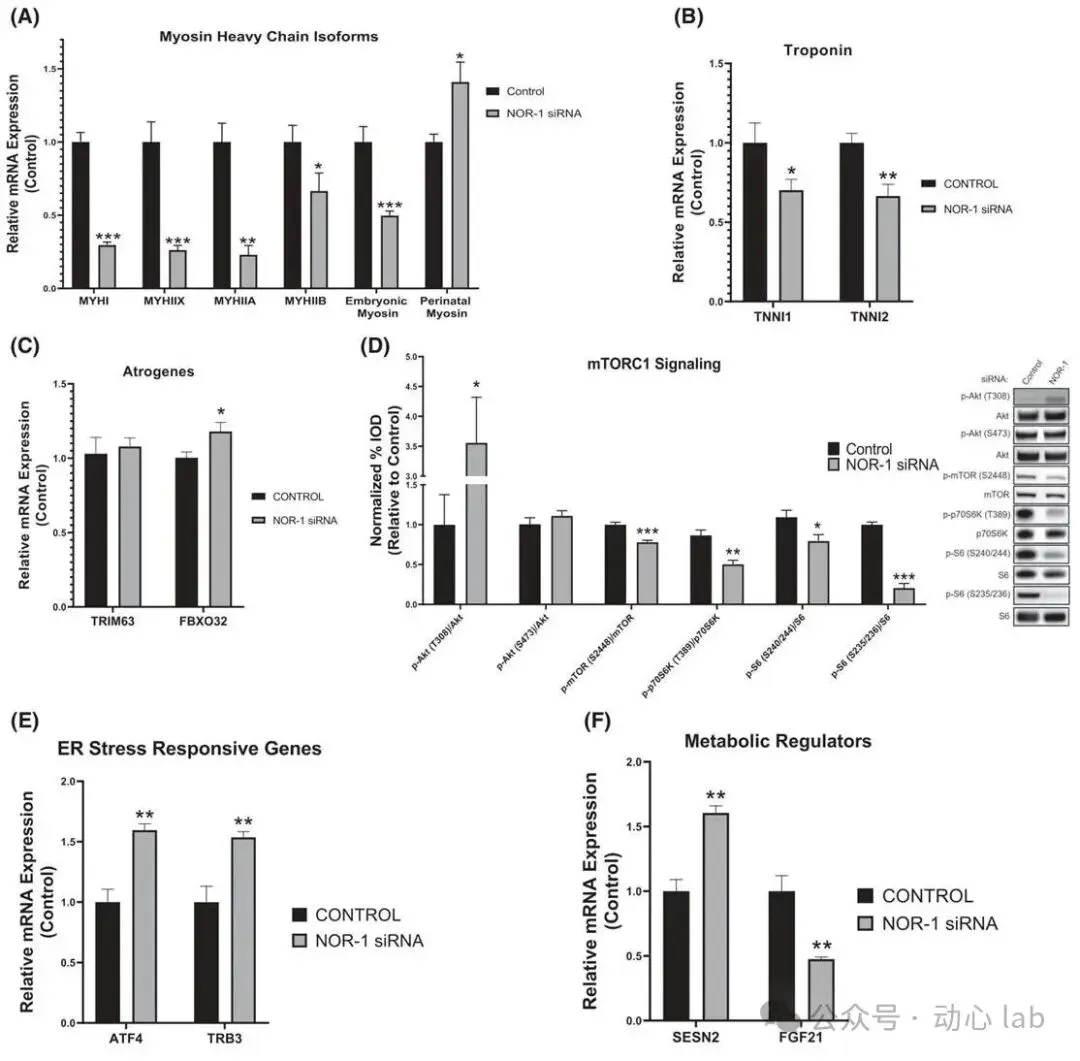
图 3|NOR-1敲低细胞的mTORC1 信号及肌球蛋白重链基因表达下降。(A)肌球蛋白重链及(B)肌钙蛋白基因表达受抑制。(C)萎缩相关基因轻度改变。(D)mTOR及其下游靶标磷酸化降低,AKT磷酸化未受抑制。(E)ER 应激相关基因轻度升高。(F)Sestrin2、FGF21 表达改变。qPCR 以 β-actin 为内参,免疫印迹按总蛋白(TPN)归一化。均值±SEM;非配对 t 检验;每组 n=5–6。*p<0.05,**p<0.01,***p<0.001,相对于对照。
04|NOR-1 敲低后的差异表达基因通路与基因本体分析
为确定 NOR-1 缺乏如何改变肌细胞转录谱,使用 RNA-Seq 分析 siRNA 敲低后的转录组(图 4)。PCA 与 Pearson 相关分析显示重复样本分组与一致性良好(图 4A、B)。各组 4 个样本,大部分测序数据 Phred 质量值 ≥30(原始数据汇总见补充表 S4),支持开展差异表达分析。58 880 个基因中鉴定出 1984个 DEG(图 4C、D)。
DEG 分析显示受 NOR-1 敲低影响最显著的 11 条通路(图 4E、F;补充表 S5),胰岛素信号和胰岛素抵抗相关基因是其中变化最明显的类别之一。乳腺癌和慢性髓系白血病相关通路也发生变化;NR4A 家族 NUR77 与 NOR-1 此前已被认为参与急性髓系白血病³¹及其他癌症的发生。³²,³³
DEG 功能注释发现,多项基因本体(Gene Ontology,GO)条目发生变化,涉及生物过程(红色)、分子功能(黄色)及细胞组分(蓝色;图 5)。肌节组织和基因表达昼夜节律调控等生物过程显著改变,与 qPCR 所见肌球蛋白重链和线粒体相关基因表达变化一致。上调和下调幅度最高的各 40 个转录本分别列于表 1、表 2。
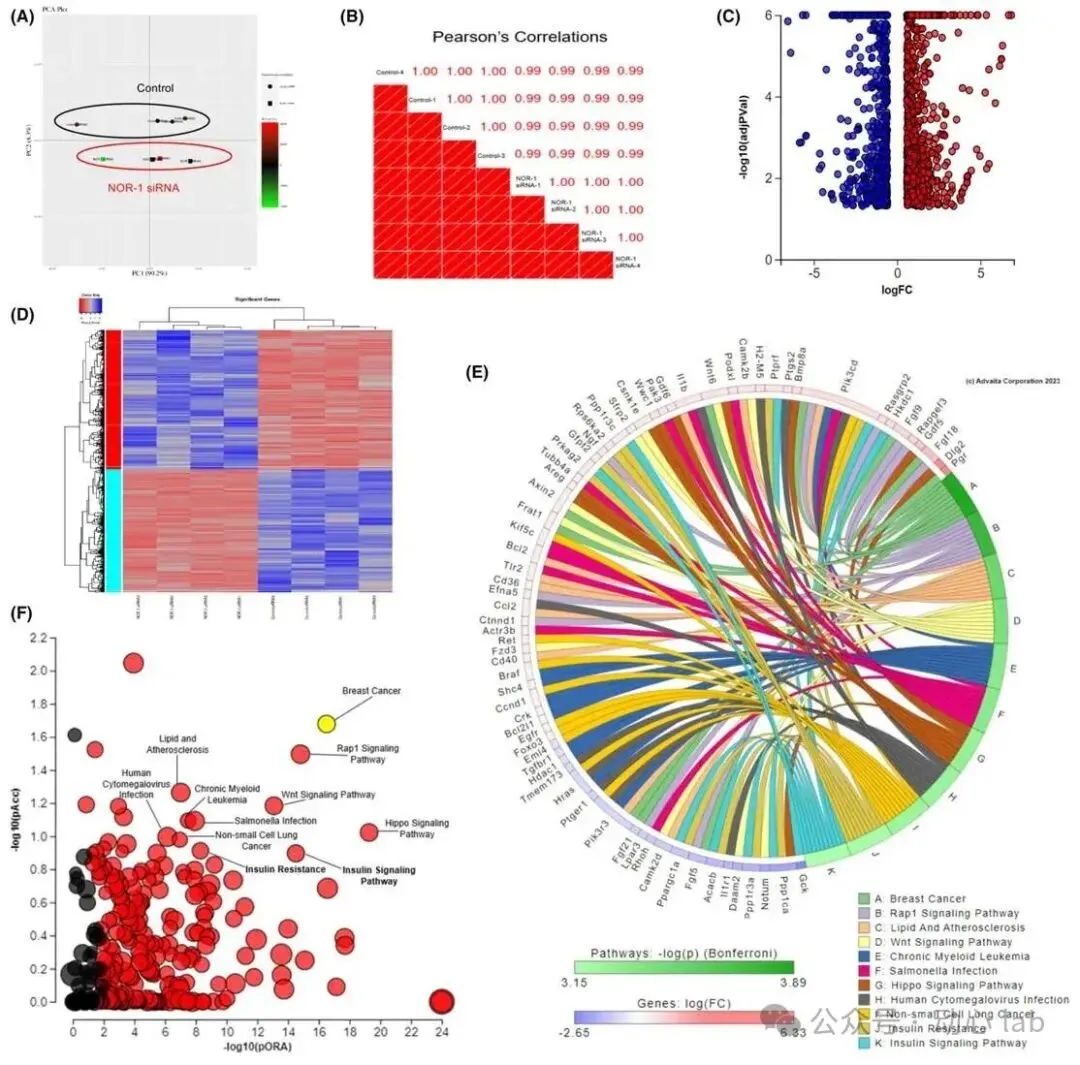
图 4|RNA-Seq数据质量与通路分析提示NOR-1 敲低扰动胰岛素相关信号。(A)PCA显示重复样本可聚为不同组。(B)RNA-Seq的Pearson 相关分析。(C)以上下调基因的对数倍数变化(LogFC)与校正后 p 值绘制火山图。(D)NOR-1 敲低后的 DEG 热图。(E、F)受影响最显著的前 11 条通路分析。
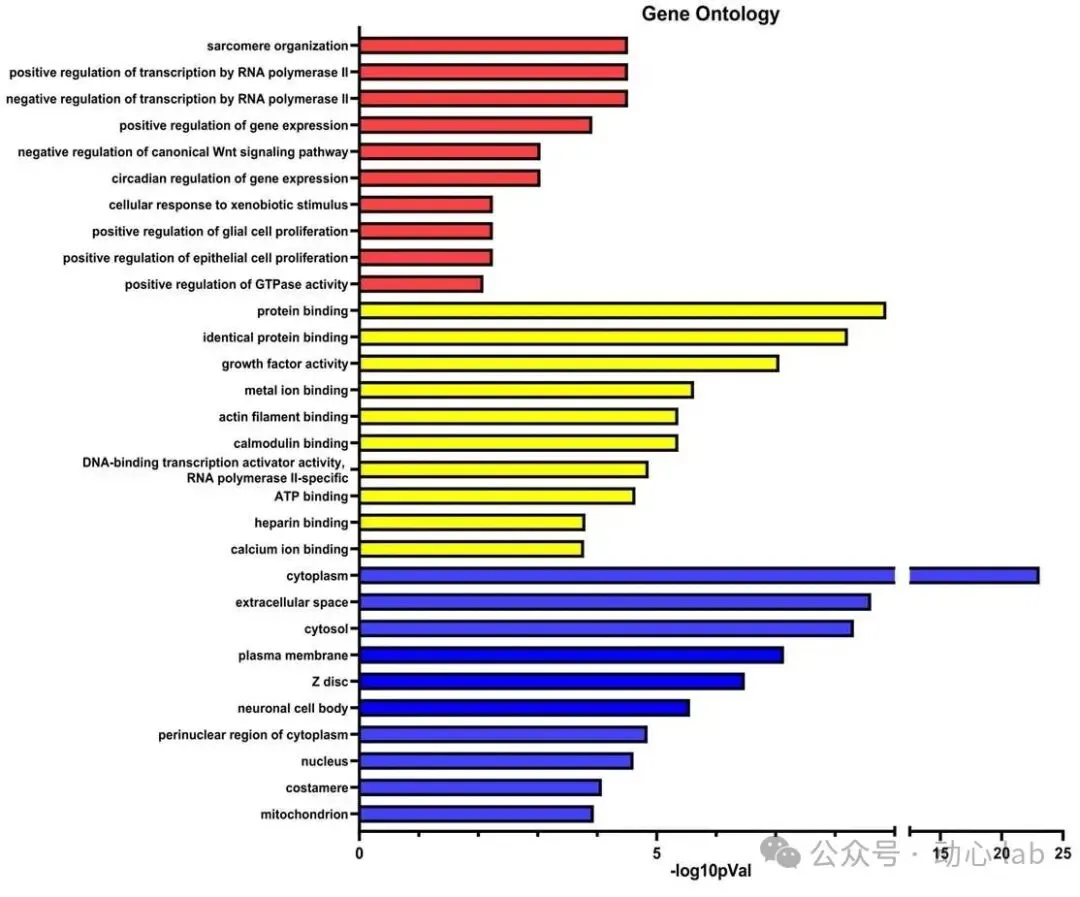
图 5|NOR-1敲低后的GO 分析。图中分别展示生物过程(红色)、分子功能(黄色)和细胞组分(蓝色)中显著富集的前 10 个条目。
表 1|NOR-1 敲低后 C2C12 肌管中上调幅度最高的 40 个基因
RefSeq 编号 | 基因 | 倍数变化 | 校正后 p 值 |
NM_022026.3 | Aqp9 | 115.766787 | 1.16E-07 |
XM_006525821.1 | Dsg1b | 103.446181 | 2.76E-31 |
NM_008829.2 | Pgr | 80.2740353 | 5.62E-06 |
XR_001778534.1 | Gm30845 | 76.65387 | 1.2E-05 |
NM_026458.4 | Abca14 | 76.2946753 | 1.19E-05 |
NM_174988.3 | Cdh22 | 70.9309955 | 1.77E-05 |
XM_006507789.3 | Dlg2 | 59.2690067 | .000145 |
XM_017312595.1 | Mcf2l | 56.309487 | .000123 |
NM_001163757.1 | Skor1 | 45.8383458 | .004524 |
XM_006515968.2 | Nrcam | 45.6167125 | 2.16E-05 |
XR_001779015.1 | LOC108167630 | 44.6451512 | .001237 |
NM_153506.4 | Clec2e | 41.4458606 | .005902 |
NM_015826.5 | Dmrt1 | 40.7956568 | 1.23E-50 |
NM_016889.3 | Insm1 | 31.2967557 | .002903 |
XM_017321587.1 | Ssu2 | 28.7646108 | 1.53E-09 |
NM_007545.2 | Hrk | 27.8530854 | 6.32E-09 |
XM_006529555.3 | Plekha6 | 27.3761206 | .001991 |
XR_001784024.1 | Gm35187 | 21.8022885 | .006572 |
XM_006504702.3 | Elfn1 | 21.4628575 | 2.32E-49 |
NM_001167593.1 | Spata31d1b | 20.1206264 | 7.04E-05 |
XM_017322303.1 | Cyb5r2 | 19.2285613 | .00748 |
NM_029489.3 | Samd7 | 18.9766843 | .008865 |
XM_006503925.3 | Ablim2 | 18.9722105 | .008179 |
NR_045739.1 | Sorbs2os | 18.489563 | .009086 |
NM_001099305.1 | Gm6880 | 18.3996748 | .012509 |
NM_023893.4 | Sapcd1 | 18.2838082 | .009719 |
XR_001778028.1 | Gm15927 | 18.2259672 | .013209 |
XM_006516817.3 | Serpinb6c | 17.2538252 | 6.5E-155 |
NM_001081060.2 | Slc9a3 | 16.2331984 | .017273 |
XR_384572.3 | Sidt1 | 16.2199997 | 7.52E-05 |
NM_198302.2 | Rbm11 | 15.1305274 | 6.19E-05 |
NM_013729.3 | Mixl1 | 15.0288335 | .046073 |
XR_866547.1 | Gm13816 | 14.9706202 | .023926 |
XM_006497078.1 | LOC102639543 | 14.8939972 | .002176 |
XR_871431.2 | Lilrb4a | 14.8132896 | .022091 |
XM_006532932.3 | Wscd1 | 14.5261514 | .001673 |
XR_001784856.1 | Gm36401 | 14.0518459 | .035275 |
NM_172750.4 | Adprhl1 | 13.713913 | 3.73E-44 |
NM_027853.2 | Mettl7b | 13.6360452 | .029979 |
NM_001081187.3 | Htra4 | 11.8135651 | .000369 |
表注|数值按原文保留。下调表的负号表示变化方向,不表示负的表达量;该列为原文报告的带符号倍数变化,不是 log₂ 倍数变化。
表 2|NOR-1 敲低后 C2C12 肌管中下调幅度最高的 40 个基因
RefSeq 编号 | 基因 | 倍数变化 | 校正后 p 值 |
XM_006538310.3 | Stra6l | −94.417168 | 1.42E-06 |
XR_866022.2 | Upp2 | −84.077196 | 8.44E-06 |
XM_006532710.3 | Bzrap1 | −79.846514 | 1.33E-05 |
NM_007677.2 | Psg17 | −57.905765 | .001361 |
NM_008532.2 | Epcam | −53.945753 | .001335 |
NR_046158.1 | 5930438M14Rik | −51.064708 | 2.28E-21 |
NM_001159743.1 | Alkal2 | −44.611589 | .000931 |
XM_017314913.1 | Fam150b | −44.611589 | .000931 |
NM_176920.4 | Lrtm1 | −44.564542 | 1.25E-08 |
NM_153509.2 | Minar1 | −44.243125 | .000914 |
XM_006510957.3 | AF529169 | −40.952785 | 5.62E-05 |
NM_001167906.1 | Cd101 | −25.294308 | .006012 |
NR_040581.2 | 1700027J07Rik | −24.993204 | .002522 |
XM_006528371.2 | Gm34521 | −23.124419 | .004888 |
XM_006532095.3 | Car4 | −22.104569 | .022299 |
XR_001782768.1 | LOC108168457 | −21.150931 | .008195 |
XM_006500201.3 | Erv3 | −19.109507 | .024963 |
XR_871276.2 | Gm39429 | −19.063771 | 2.18E-05 |
XM_006513046.3 | Mybpc1 | −17.523195 | .030736 |
XM_006514112.2 | Phyhipl | −15.392592 | .025886 |
NM_176838.2 | Esrp2 | −15.191867 | .024503 |
NM_001166062.2 | Gm16381 | −14.894723 | 5.52E-29 |
XR_001783839.1 | LOC108168870 | −14.486449 | .031682 |
NM_001313743.1 | Asb12 | −14.323287 | .033141 |
XM_006528486.3 | Cldn2 | −14.252223 | 6.7E-142 |
XR_390343.1 | 2310002L09Rik | −13.029075 | 1.18E-12 |
XM_006519636.3 | Mss51 | −12.7147 | 1.49E-26 |
NM_133681.4 | Tspan1 | −12.519521 | .002241 |
NM_172449.2 | Tspoap1 | −12.284033 | 4.21E-08 |
XM_006525086.3 | Daam2 | −12.071237 | .004206 |
NM_001357743.1 | Rasgrf1 | −11.833297 | .008096 |
NM_001357905.1 | Gm1070 | −11.118664 | .008449 |
NM_001293690.1 | Ido1 | −10.504634 | .00218 |
NM_001013826.2 | Dupd1 | −10.213204 | 4.56E-46 |
NM_177918.1 | AV320801 | −9.7715185 | .026921 |
NR_131140.1 | Gm6093 | −9.6126124 | 9.82E-10 |
XR_001785102.1 | Vmn1r4 | −9.4209871 | .016952 |
NM_001362400.1 | Otop2 | −9.4084184 | .032728 |
XM_006517454.3 | Ckmt2 | −9.4008128 | 3.12E-83 |
NM_001307989.1 | Nr4a3 | −9.3121148 | 7.44E-35 |
表注|数值按原文保留。下调表的负号表示变化方向,不表示负的表达量;该列为原文报告的带符号倍数变化,不是 log₂ 倍数变化。
05|PERM1 表达受 NOR-1 调节
为寻找可能受 NOR-1转录调控的靶标,将本研究 RNA-Seq 数据与骨骼肌 NOR-1过表达转基因小鼠微阵列数据中上调和下调幅度最高的各 50 个基因比较。¹³在转基因小鼠上调最高的 50 个基因中,6 个在本研究敲低后显著下调至少 2 倍(图 6A),其中包含 NOR-1(NR4A3)本身。
肌动蛋白结合 Rho 激活蛋白 ABRA 在 NOR-1 转基因动物中 mRNA 与蛋白均上调,¹³也可在运动后升高。³⁴ABRA 在心肌中受 MEF2C 调节,并参与 SRF 介导的心脏重构。³⁵然而,本研究中即使 MEF2C 显著升高,ABRA 仍在 NOR-1 敲低后降低 2.6 倍。MYH1 与 MYH8 在两个数据集中均与NOR-1 表达呈正向关系,支持先前 NOR-1 过表达改变骨骼肌收缩特征的发现。²⁴肌红蛋白(MB)在本研究中降低 4.9 倍,与 NOR-1 过表达动物骨骼肌 MB 含量升高相符。¹³,²⁴qPCR 对 ABRA 和 MB 的分析验证了 RNA-Seq 结果(补充图 S3)。
将 NOR-1 转基因动物中下调最高的 50 个基因,与本研究敲低后显著上调的基因比较,只有维生素 D 相关基因 CYP27A1 重叠(图 6B);该基因已知可在骨骼肌表达。³⁶除 NR4A3 本身外,两个数据集中与 NOR-1 呈正向关系的 5 个基因中,只有 PERM1 被明确认为是骨骼肌线粒体生物发生的重要调节因子。³⁷–⁴⁰
qPCR 验证显示,NOR-1 siRNA 处理后 PERM1 mRNA 降低超过 90%(图 6C);即使最低剂量衣霉素(0.5 μg/mL)也使 PERM1 mRNA 降低约 50%(图 6D)。这些结果提示骨骼肌 PERM1 表达与 NOR-1 呈正向关系,并在肥胖³⁷及 ER 应激诱导时同样受到抑制。
基于 DEG 富集的上游调节因子分析(图 6F)显示,敲低后的表达特征与Wnt3a、Stat5b、Il1b 激活以及 SMAD3、Foxh1、Kcnn4 信号抑制相一致。表达特征还与3 种化学物质所对应的 DEG 显著相关(图 6G)。此外,mmu-miR-192-5p 与 mmu-miR-215-5p 的多个靶基因在 NOR-1 敲低后显著改变(图 6H)。
为检验转录改变是否影响分化,通过慢病毒表达 NOR-1 shRNA,构建稳定 C2C12 肌母细胞系。诱导分化后,NOR-1 mRNA 下降超过 90%;分化 5 d 后可见肌管形成减少的定性表现(图 6I)。与在成熟肌管分化后再敲低NOR-1 时总肌球蛋白重链未显著变化不同,在肌母细胞阶段先敲低 NOR-1 再分化,其肌球蛋白重链蛋白丰度显著降低(补充图 S4B)。
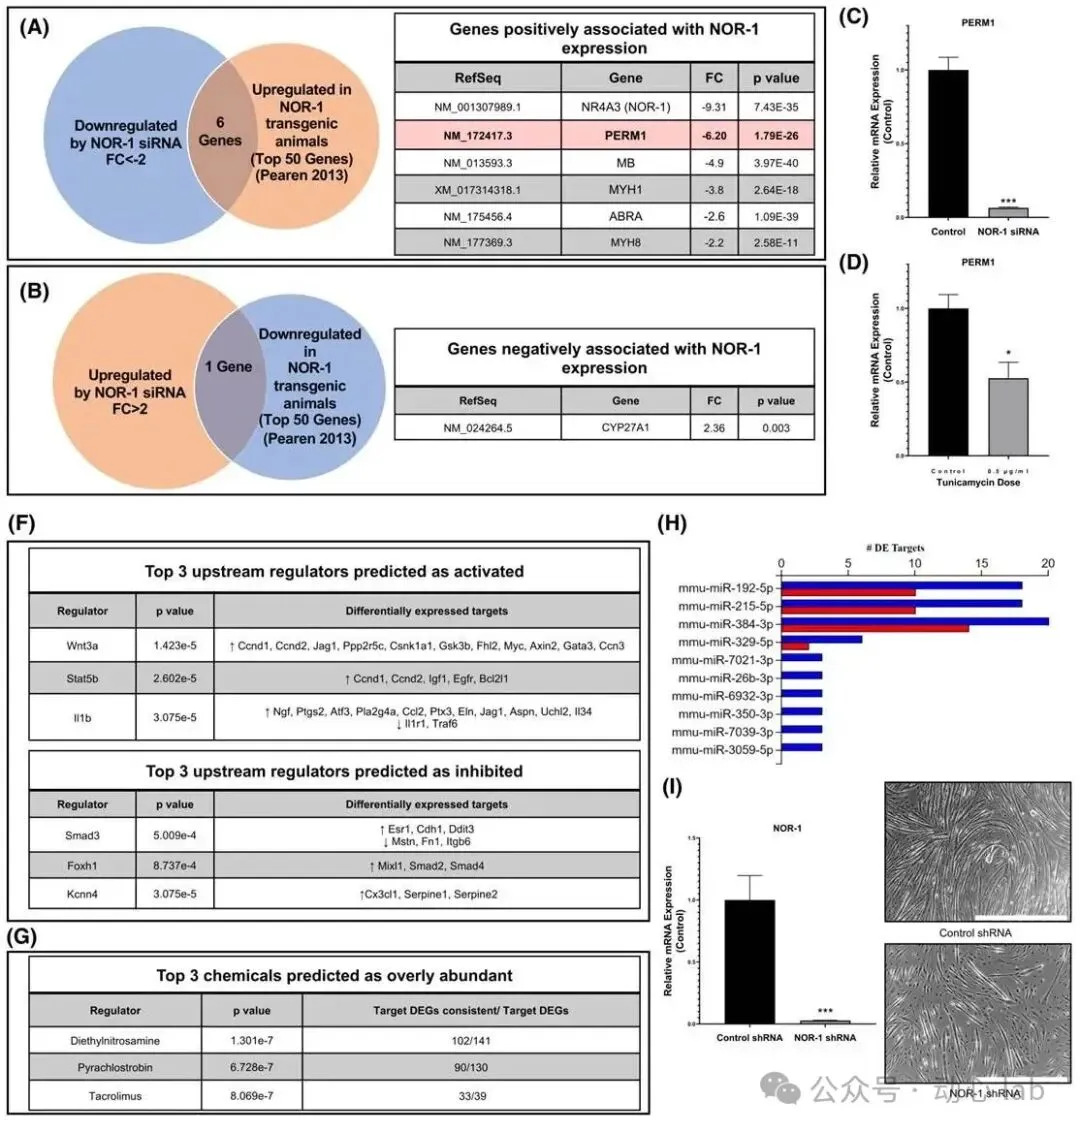
图 6|NOR-1基因干预改变PERM1 表达。(A)比较 NOR-1 转基因动物上调最高的 50 个基因与本研究敲低后显著下调至少 2 倍的全部基因;共有 6 个交集,包括 NR4A3 本身及另 5 个呈正向关系的基因。(B)转基因动物下调最高的 50 个基因与本研究敲低后显著上调至少 2 倍的基因比较,仅 1 个重叠。(C)NOR-1 敲低后 PERM1 表达下降。(D)衣霉素处理后 PERM1 下降。(F)基于 DEG 富集,列出预测激活和抑制的前三个上游调节因子及其靶基因,上箭头为基因表达升高,下箭头为降低。(G)根据与化学物质作用特征相符的 DEG 数量,预测排名前三的上游化学物质。(H)预测受影响的 miRNA 及靶 DEG;蓝条为靶基因下调,红条为上调。(I)慢病毒构建稳定细胞系后,对照与 NOR-1 shRNA 肌管的 NOR-1 表达(每组 n=3),及分化5 d 后肌管形成受抑制的代表性图像,比例尺 1000 μm。siRNA 肌管qPCR 用β-actin 为内参;衣霉素实验用GAPDH,因为预实验显示其稳定性优于 β-actin;稳定 shRNA 细胞系用 HPRT。均值±SEM;非配对 t 检验;每组 n=3–6。*p<0.05,**p<0.01,***p<0.001,相对于对照。原图未设置 E 面板,面板字母按原文保留。
Discussion
讨论
本研究旨在表征NOR-1 敲低在 C2C12 肌管中引起的转录变化。以往骨骼肌 NOR-1 主要作为运动适应调节因子研究,¹³,²⁴,²⁷,⁴¹,⁴²但已有报道指出,肥胖、糖尿病临床前模型¹¹及身体活动不足¹²均伴随 NOR-1 表达降低。功能缺失研究发现其与线粒体 ATP 生成、细胞呼吸受扰¹²,²³及胰岛素信号改变²⁹相关。尽管如此,我们对 NOR-1 在骨骼肌中的转录靶标和维持细胞代谢的重要性仍知之甚少,肥胖或活动不足中的何种因素改变 NOR-1 表达也不清楚。
本研究发现,NOR-1 基因表达可急性响应胰岛素刺激,但棕榈酸暴露使其基础表达及胰岛素反应性均下降。这进一步支持了既往肥胖人群 NR4A 胰岛素反应受损的报道。⁴³此外,ER 应激诱导可降低 NOR-1,而最高 500 μM 的 H₂O₂ 暴露未降低其表达。因此,NOR-1 抑制可能由胰岛素敏感性下降、ER应激或两者共同造成。
胰岛素抵抗和 ER 应激相关因素均被认为参与糖尿病及肌肉活动不足。⁴⁴–⁴⁷本研究中 NR4A 家族成员对衣霉素或 H₂O₂ 的响应并不一致,甚至方向相反。由于其结构高度相似,⁴⁸–⁵¹不同应激下的相反调节可能体现代偿作用。虽然siRNA 敲低 NOR-1 未使 NUR77 或 NURR1 显著代偿升高,却抑制了多种线粒体和代谢调节因子。鉴于 NOR-1 过表达动物的 MEF2C增加,²⁴敲低后同样出现 MEF2C 上升令人意外。PPARD与 PPARG 的表达未显著改变,而 PGC-1α、TFAM 和 CPT1β 均显著降低。
一个重要发现是,本研究和NOR-1 转基因动物的结果都显示 PERM1 与 NOR-1 表达密切相关。¹³因此,NOR-1 可能调节 PERM1,继而影响 PGC-1α 相关基因表达。敲低细胞线粒体膜去极化及融合/分裂蛋白改变提示:缺乏足够 NOR-1 时,电子传递系统蛋白丰度减少,可能使膜电位降低并触发线粒体网络分裂。骨骼肌线粒体体积、功能和胰岛素抵抗间的关系仍有争议,但 NOR-1 可能是连接胰岛素抵抗与线粒体功能下降的潜在靶点。
衣霉素使 PERM1 mRNA 明显降低,进一步支持 NOR-1 与 PERM1 的关系。棕榈酸也降低 PERM1,但许多样本中的 PERM1 mRNA 无法定量(未展示数据)。RNA-Seq DEG 特征还预测了与他克莫司(tacrolimus)作用相符的表达模式。他克莫司是钙调神经磷酸酶抑制剂,与器官移植后糖尿病发生增加及骨骼肌功能障碍有关。⁵²在骨骼肌细胞中,抑制钙调神经磷酸酶可阻止Ca²⁺ 介导的 NOR-1 诱导。²⁷因此,他克莫司暴露后骨骼肌NOR-1 表达是否改变,值得进一步检验。
NOR-1 可调节脂质氧化,²³且本研究显示其敲低使线粒体膜去极化,因此mTORC1 信号降低可能与 ATP 生成减少有关。²³骨骼肌 CPT1β 和脂质氧化缺陷已被发现与 mTORC1 信号降低相关。⁵³mTORC1信号下降也可能促成敲低后 Akt 磷酸化增加;但作者同时认为,Sestrin2表达升高也可能介导所见 mTORC1 变化。
转录组分析显示多条癌症相关通路受扰,肌节组织相关 DEG 过度富集,与 NOR-1 转基因动物肌肉肥大、纤维类型变化和耐力增加的结果一致。²⁴虽然本研究未定量比较对照和 NOR-1 shRNA 细胞的肌管形成,但其分化可能因线粒体能量生成不足或收缩蛋白表达受抑而受影响。
NR4A 家族 NUR77 的缺失可影响小鼠发育期肌发生,⁵⁴支持该家族参与肌发生的观点。本研究 RNA-Seq 显示,含免疫球蛋白样及纤维连接蛋白Ⅲ型结构域的蛋白 1(IGFN1)转录本降低约 8 倍(p=1.8×10⁻¹⁷⁵),qPCR 也确认其显著受抑制(补充图 S3)。IGFN1 已被发现调节 C2C12 肌母细胞融合与分化,⁵⁵,⁵⁶可能是 NOR-1 相关、影响肌发生的候选靶标。
在已分化肌管中进行siRNA 敲低,肌球蛋白重链蛋白含量未显著改变;而在肌母细胞阶段先用 shRNA 敲低,再诱导分化,所得肌管的肌球蛋白重链蛋白低于对照(补充图 S4A、B)。这些观察提示 NOR-1 可能参与肌细胞分化,潜在机制包括线粒体功能调节。先前人体骨骼肌肌母细胞研究同样发现,NOR-1 敲低使分化和肌球蛋白含量降低,⁵⁷提示其可能在不同物种中具有重要作用。总之,本研究揭示了与骨骼肌 NOR-1 表达呈正向关系的多个靶标,并提示NOR-1 可能是维持适当肌母细胞分化和线粒体状态的重要核受体。
Methods
研究材料与方法
2.1 动物
全部实验方案均经田纳西大学健康科学中心机构动物护理与使用委员会批准。体内实验使用购自 Jackson Laboratories(美国马萨诸塞州)的年轻(5月龄)或老龄(24 月龄)雄性 C57BL6 小鼠。研究者根据本实验室预实验和已发表数据,以肌纤维横截面积、肌肉湿重和最大肌力为变量进行事前样本量估算:在检验效能为 0.80、α=0.05 的条件下,各实验组需 8 只动物。
2.1 细胞培养条件
C2C12 肌母细胞购自 ATCC(美国弗吉尼亚州马纳萨斯),维持在含10% 胎牛血清(FBS)与 1% 抗生素/抗真菌制剂的 DMEM 生长培养基(GM)中。细胞置于 37 °C、5% CO₂ 的湿润培养箱。诱导分化时,将 GM 更换为含 2% 热灭活马血清及 1% 抗生素/抗真菌制剂的 DMEM 分化培养基(DM)。
2.2 细胞处理
C2C12 肌母细胞长至 70% 汇合度后分化 5 d,形成成熟肌管。以 DM 配制 500 μM 棕榈酸,棕榈酸与 BSA以 6:1 比例结合于 NaCl 溶液中(Cayman Chemicals,29558),对照使用等摩尔浓度 BSA(29556),孵育 16 h。随后以胰岛素(原文为 100 nmol)或溶剂 H₂O 刺激 20 min,裂解细胞用于免疫印迹;用于基因表达分析时,棕榈酸或 BSA 处理后再以相同胰岛素或溶剂刺激 2 h,然后提取 RNA。
为评估内质网(ER)应激对 NR4A 转录的影响,以不同浓度衣霉素(tunicamycin;Sigma-Aldrich,T7765)或溶剂 DMSO 处理肌管 16 h 后提取 RNA。为评估活性氧(ROS)的影响,以不同浓度 H₂O₂ 或 H₂O 处理肌管 16 h 后提取 RNA。亮氨酸刺激预实验显示,2 mM 亮氨酸可提高核糖体蛋白 S6 Ser235/236 位点的磷酸化。C2C12细胞在最低必需培养基(MEM)中无血清饥饿 12 h,再以 2 mM 亮氨酸或溶剂 H₂O 刺激 2 h。
2.3 慢病毒转导介导的 RNA 干扰
C2C12 肌母细胞长至 50% 汇合度时,以慢病毒转导实现NOR-1 敲低。在 96 孔板中,以含 8 μg/mL Polybrene 的 GM 加入靶向 NOR-1 的慢病毒颗粒(Sigma-Aldrich;TRCN0000025995;靶序列 GCAGACTTATGGCTCGGAATA),转导 24 h。对照使用含 pLKO.1-TRC 载体的慢病毒颗粒(SHC001V)。随后在含 2 μg/mL 嘌呤霉素的 GM 中扩增 7 d,以筛选转导细胞,通过 qPCR 验证敲低效率。转导后的细胞在 GM 中扩增,达 80% 汇合度时诱导分化为肌管,分化持续 5 d。
2.4 分化肌管中的 siRNA 干扰
C2C12 肌母细胞达到 70% 汇合度后,在 DM 中分化 96 h,先形成肌管再转染。使用 Lipofectamine RNAiMAX(3.5 μL/mL),转染 NR4A3(NOR-1)Silencer Select siRNA(Invitrogen,s70688;原文剂量 100 nmol)或 Silencer Select Negative Control No. 1 siRNA(4390843)。孵育 24 h 后 PBS 洗涤,更换 DM;在分化第 4 天和第 6 天进行转染,第 8 天采集细胞。
译注:原文对胰岛素和siRNA 均使用“100 nmol”这一单位,未标明最终体积或明确写为浓度;此处保留原文,不能据此直接改写为 100 nM。
2.5 基因组 DNA 提取及线粒体与核 DNA 比值测定
为评估 NOR-1 敲低对肌管线粒体 DNA 拷贝数的影响,按生产商说明使用 PureLink Genomic DNA Mini Kit 提取 DNA。qPCR 测定线粒体 DNA(mtDNA)相对拷贝数,并以核 DNA(nDNA)相对拷贝数归一化;分别采用 mt-ND2 与 Pecam1 引物检测 mtDNA 和 nDNA。基于两套引物的 Ct 值,采用 2−ΔΔCt法计算相对 mtDNA 含量。
2.6 线粒体膜电位测定
在黑色 96 孔板中培养 C2C12 肌管。siRNA 介导 NOR-1 敲低或对照 siRNA 处理后,于分化第 8 天按说明用 JC-1 染色。使用 Synergy H1 多功能微孔板读数仪定量荧光,以红/绿荧光强度比作为线粒体膜电位指标。所有实验值均扣除未染色肌管孔的背景信号。结果以 siRNA 处理组相对于对照组的膜电位表示,使用 Lionheart FX 荧光显微镜在孔内随机位置采集图像。
2.7 免疫印迹
使用含 5 mM EDTA 和 1× Halt 蛋白酶/磷酸酶抑制剂的冰冷 RIPA 裂解细胞。DC 蛋白测定试剂盒比色定量蛋白。取约 20 μg 蛋白进行SDS-PAGE,转移至 PVDF 膜,使用No-Stain Protein Labeling Reagent 染膜,以总蛋白作为归一化依据。在含5% BSA 的 TBST 中封闭,并用 iBright FL1500 系统荧光定量总蛋白。一抗以1:1000 用 TBST 稀释,4 °C 孵育过夜;抗兔或抗鼠 IgG 二抗以 1:10 000 稀释,室温孵育 1 h。使用 iBright FL1500 及配套软件成像分析。抗体生产商与货号见原文补充表 S1。
2.8 实时定量 PCR
将 C2C12 肌管中提取的约 1 μg RNA,按说明使用含 dsDNase 的 Maxima H Minus First Strand cDNA Synthesis Kit 逆转录为 cDNA。采用 PowerUp SYBR Green Master Mix 和QuantStudio 3 PCR 系统进行 qPCR:50 °C 2 min、95 °C 10 s,随后 40 个循环(95 °C 15 s、60 °C 60 s)。融解曲线步骤为 95 °C 15 s、60 °C 60 s、95 °C 15 s;多峰样本不纳入分析。采用 2−ΔΔCt法估算转录本相对表达水平。引物序列见原文补充表 S2、S3。
2.9 RNA 提取与测序
使用 TRIzol 和氯仿萃取 C2C12 肌管 RNA,再以 PureLink RNA Mini Kit 纯化。Agilent 2100 Bioanalyzer 评估 RNA 数量与质量。Azenta Life Sciences 完成标准 mRNA 测序,fastq 文件经 SFTP 传至田纳西大学健康科学中心(UTHSC)分子生物信息学核心平台。
各 fastq 文件使用 FastQC 和 FASTX trimmer 质控与修剪,¹⁴,¹⁵再用 RNA-STAR 比对至 mm10 参考基因组。¹⁶采用自定义 Python 脚本从 SAM 文件提取比对计数,并用 TMM 方法归一化。将归一化矩阵导入 R,计算各条件下每个基因的均值、方差、标准差和标准误。通过 Pearson 相关图识别并去除组内离群样本,再重新分析;使用主成分分析(PCA)确定样本聚类。
采用 DESeq2 识别 log₂ 倍数变化 ≥0.58 且 p<0.05 的基因,并用 Benjamini–Hochberg 方法校正多重检验,校正后p<0.05 的基因视为差异表达基因(DEG)。将其用于非监督层次聚类热图。基因列表导入Advaita Bio 的 iPathwayGuide 商业软件,用于通路、基因本体、miRNA及上游调节因子功能分析(https://www.advaitabio.com/ipathwayguide)。
2.10 统计学分析
结果表示为均值±SEM。采用非配对 t 检验;剂量–反应实验采用单因素方差分析;棕榈酸、亮氨酸及胰岛素处理实验采用双因素方差分析。若存在显著交互作用,采用 Tukey 事后检验(GraphPad Prism)。p<0.05 视为统计学显著。




