研报速递
出处: Paez HG, Pitzer CR, Ferrandi PJ, Mohamed JS, Alway SE. NOR-1 Overexpression Elevates Myoglobin Expression via PERM1 and Enhances Mitochondrial Function and Endurance in Skeletal Muscles of Aged Mice. FASEB J. 2025;39(8):e70542.
作者介绍:
Abstract
摘要
骨骼肌的健康状况与功能随年龄增长而下降,最终导致活动能力受损甚至失能。运动是减轻老龄相关肌肉功能障碍并逆转功能缺陷最有效的干预措施之一。然而,老年人参与和完成运动训练的能力可能受限。因此,深入理解运动效应的分子转导因子,对于发现改善肌肉健康的新型药物靶点至关重要。对人类运动反应的转录组分析发现,核受体 NR4A3(NOR-1)是急性运动后反应最显著的基因之一。我们此前观察到,在体外敲低 NOR-1 可改变 C2C12 肌管的代谢信号;具体而言,PERM1、CKMT2、肌红蛋白的表达以及 mTORC1 信号均受到影响。本研究在此基础上发现,NOR-1–PERM1–肌红蛋白轴在体外调控肌红蛋白表达。此外,衰老与骨骼肌 NOR-1 表达降低有关。尽管运动可改善老龄肌肉功能,但过表达运动反应基因 NOR-1 能否在衰老背景下产生获益此前尚未得到检验。我们发现,在老龄肌肉中过表达 NOR-1 可提高肌肉耐力和线粒体呼吸,并增加此前通过功能缺失研究鉴定的 NOR-1 反应基因的表达。然而,NOR-1 过表达未提高最大肌肉力矩,且伴随自噬相关信号增强,肌肉湿重出现幅度较小但具有统计学意义的下降。这些数据提示,NOR-1 表达可能减轻肌肉易疲劳性,并以依赖 PERM1 的方式促进肌红蛋白表达。
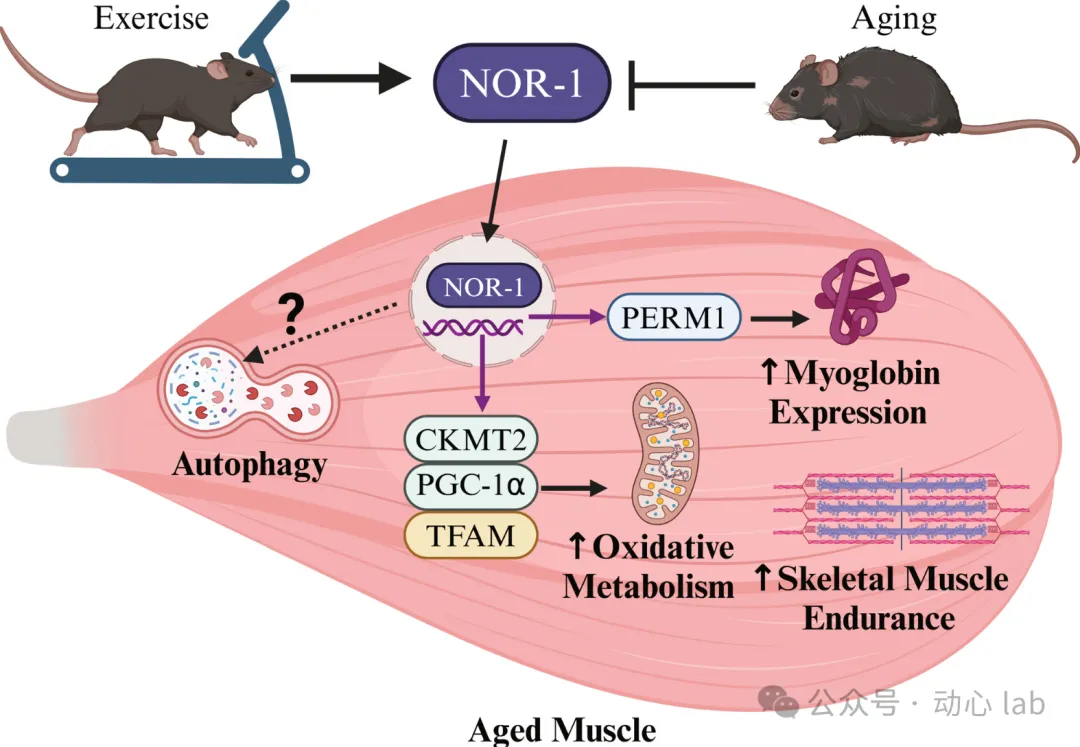
图片摘要|骨骼肌中核受体NOR-1的表达对运动高度敏感,但在老年小鼠中表达降低。NOR-1的过表达导致PERM1依赖性的肌红蛋白增强,同时增强了多种氧化代谢调节因子和自噬标志物的基因表达。在老年动物中,腺相关病毒介导的NOR-1过表达增强了线粒体功能和肌肉耐力。
Introduction
前言
Results
研究结果
01|NOR-1 表达随运动剂量增加而升高,但在老龄骨骼肌中下降
急性运动和肌肉收缩可诱导NOR-1 表达,¹⁷,²³但运动持续时间和强度对其影响尚不明确;衰老是否伴随骨骼肌 NOR-1 表达不足也未确定。研究者令年轻(5月龄)雌雄小鼠完成 15、30 或 45 min 中等强度跑台运动(图 1A),于运动后 1 h 测定腓肠肌基因表达。跑步仅 15 min,NOR-1 表达即约为对照的 2.5 倍,但差异未达统计学显著性(p=0.3191;d=2.06);30 min 后约升高至 3 倍(p=0.049;d=3.46),45 min 后约升高至 7 倍(p=0.0013;d=1.79;图 1B)。结果提示,在该中等强度方案下,NOR-1 表达随有氧运动时间延长而增加。
随后通过电刺激诱发急性等长收缩,研究 NOR-1 的强度反应(图 1C、D)。腓肠肌 NOR-1 表达随低于最大强度的刺激频率升高而增加(图 1E):10 Hz 后约为对照的 2.6 倍,未达显著性(p=0.184;d=3.35);25 Hz 和 50 Hz 后分别约为 4.7 倍(p=0.0007;d=4.03)和 6 倍(p<0.0001;d=3.59)。与运动诱导的表达升高相反,27–31 月龄雌雄老龄小鼠跖肌的NOR-1 基因表达较 9 月龄雌雄年轻成年小鼠低 45%(d=−1.47;图 1F)。
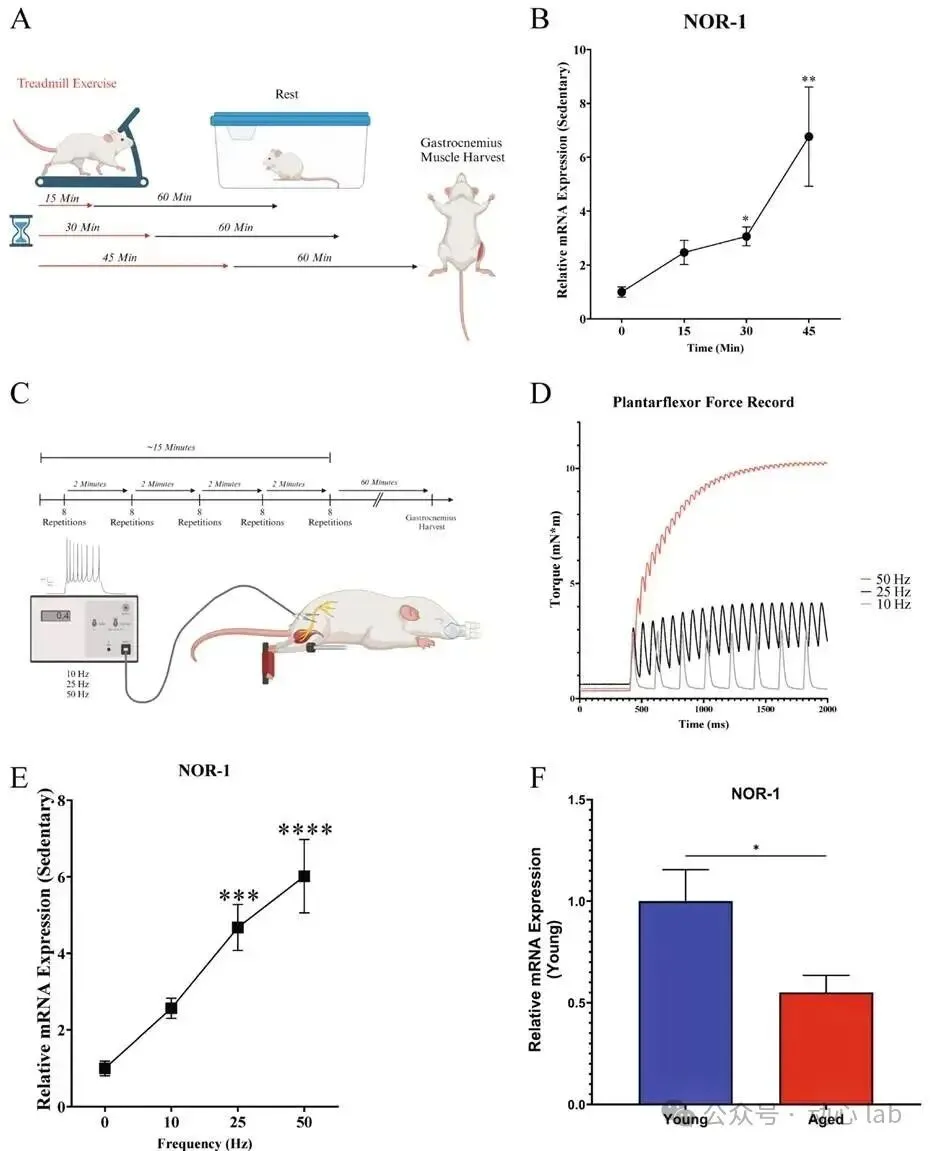
图 1|运动持续时间、收缩强度与年龄对骨骼肌 NOR-1 表达的影响。(A)有氧运动方案:5 月龄小鼠以 12 m/min 跑台运动 15 min(n=4)、30 min(n=4)或 45 min(n=6),恢复 1 h 后采集腓肠肌;对照组 n=6。(B)不同跑步时长后的腓肠肌 NOR-1 表达。(C)等长运动方案:麻醉后在胫神经处放置皮下电极,于足部连接测力踏板时施加不同频率刺激;图示重复次数及组数。(D)不同刺激频率下跖屈肌力矩记录。(E)10 Hz(n=3)、25 Hz(n=4)、50 Hz(n=4)电刺激诱发等长收缩后的腓肠肌 NOR-1 表达;未刺激对照 n=6。(F)9 月龄(n=6)与 27–31 月龄(n=6)小鼠跖肌 NOR-1 表达。HPRT 为内参;均值±SEM。(B)Kruskal–Wallis 检验,(E)单因素方差分析,(F)非配对 t 检验;*p<0.05,**p<0.01,***p<0.001,****p<0.0001。A、C 使用 BioRender 制作;原文所列作品链接为 q90w595 和 u94q689。
02|敲低 PERM1 消除 NOR-1 对肌红蛋白的诱导,但不影响 CKMT2
既往功能缺失结果显示,NOR-1表达不足与多种氧化代谢相关基因下调有关。²⁷研究者于 C2C12 分化第 3 天用 AAV9 将经 T2A 连接的 NOR-1/eGFP 导入肌管,以仅表达 eGFP 的 AAV9 为对照(图 2A)。感染后第 7 天可见强烈 GFP 荧光(图 2B),NOR-1 基因表达约增加 94 倍(图 2C)。与先前敲低实验相呼应,MFN2、ATP5A1、COQ3、TFAM、ANT1 以及 PGC-1α 表达均有所升高。尤其是CKMT2 增加 205%(p=0.0011;d=2.61)、肌红蛋白增加 257%(p<0.0001;d=4.57)、PERM1 增加 345%(p<0.0001;d=4.81;图 2D)。
PERM1 与线粒体定位、功能和运动适应有关,²⁹–³¹因此研究者将 NOR-1 过表达与 PERM1 siRNA 敲低组合使用(图 2E)。在 GFP 对照肌管中,PERM1 siRNA 使 PERM1 表达下降约 85%(p<0.0001;d=−4.51)。在对照 siRNA 条件下,NOR-1 AAV 使 PERM1 相对于 GFP AAV 提高 310%(p<0.001;d=10.15)。而在 NOR-1 AAV 处理肌管中,PERM1 siRNA 使 PERM1 表达下降 79%(p<0.0001;d=−11.12),下降后与 GFP AAV+对照 siRNA 组相近(p=0.8589;d=−0.46;图 2F)。由此,后续变化不能简单归因于 PERM1 被压至低于通常对照水平。
敲低 PERM1 无论在 GFP 还是 NOR-1 转导肌管中,都未影响CKMT2 表达;无论 siRNA 条件如何,NOR-1 AAV 均可提高 CKMT2(图 2G)。相反,NOR-1 AAV 使肌红蛋白表达提高超过3 倍(p=0.0006;原文 d=−4.42);在 GFP 对照肌管中,PERM1 敲低并未降低肌红蛋白(p=0.9889;d=0.34),却完全消除了 NOR-1 诱导的肌红蛋白升高。具体而言,NOR-1 AAV 肌管中的 PERM1 敲低使肌红蛋白下降 80%(p<0.0001;原文 d=11.67),降至与 GFP AAV+对照 siRNA 组相近的水平(p=0.4924;d=−1.00;图 2H)。因此,NOR-1 诱导的肌红蛋白升高依赖 PERM1,而 CKMT2 升高在该实验中不依赖PERM1。
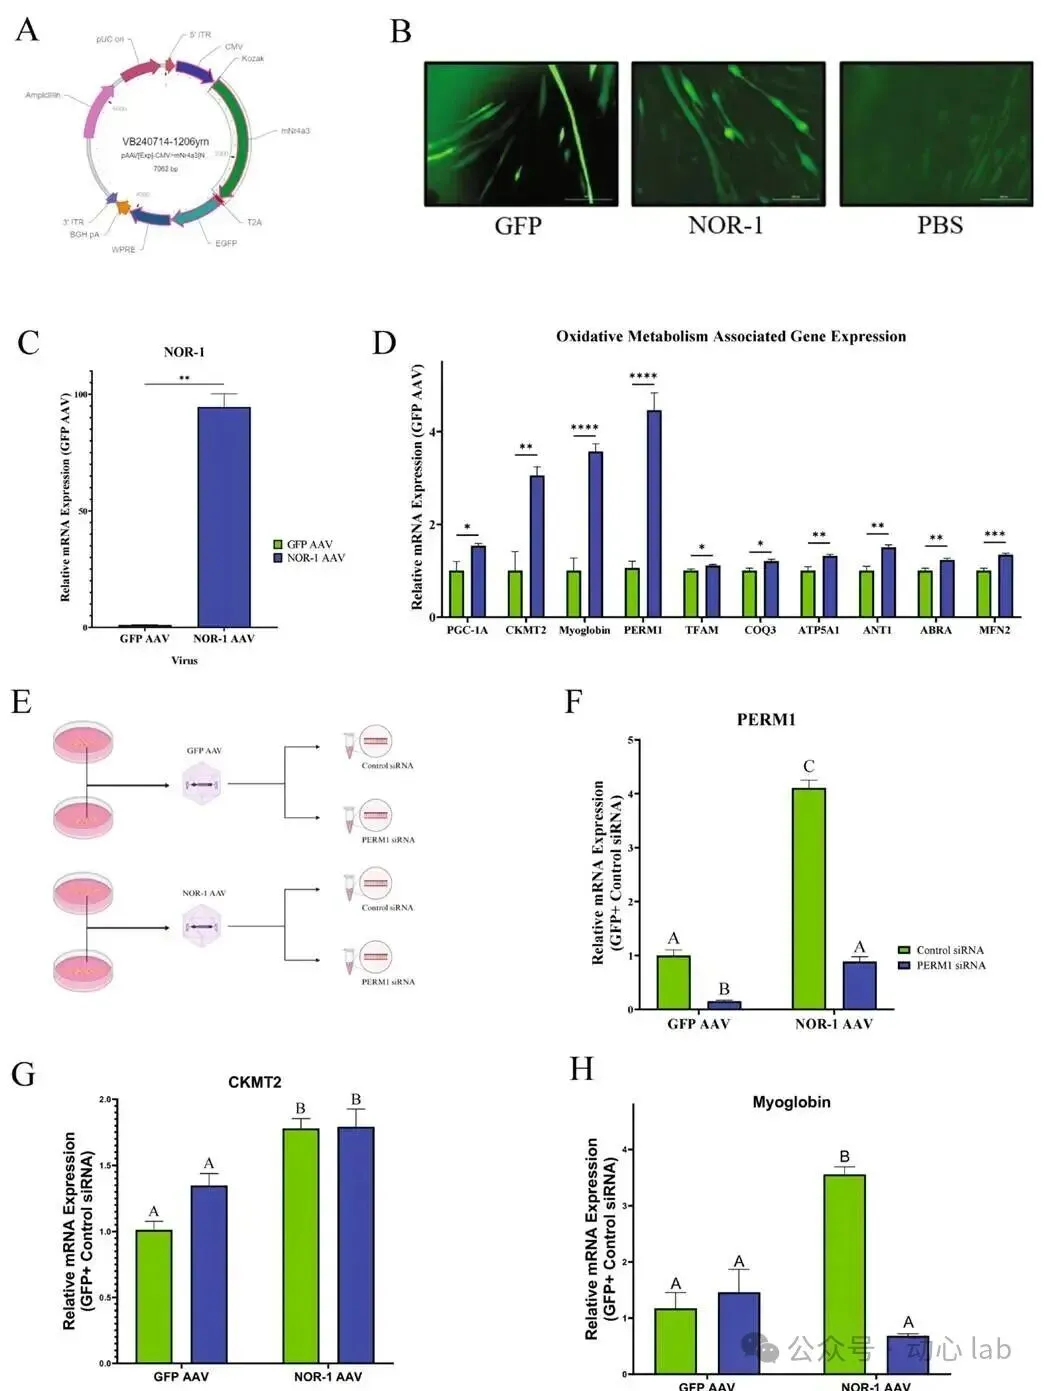
图 2|NOR-1过表达提高C2C12 肌管的代谢相关基因表达。(A)NOR-1 AAV9 载体图。(B)AAV9 转导后 GFP 阳性肌管图像;比例尺 200 μm。(C)转导 7 d 后 NOR-1 基因表达(n=6)。(D)NOR-1 过表达后代谢相关基因表达(n=6)。(E)方案:分化 3 d 后用表达 NOR-1/GFP 或对照 GFP 的 AAV 转导,5 d 后加入 PERM1 靶向或阴性对照 siRNA,2 d 后采样。(F)PERM1、(G)CKMT2 与(H)肌红蛋白表达(各 n=6)。HPRT 为内参;均值±SEM。(C、D)使用非配对 t 检验,方差不齐时作 Welch 校正;(F–H)用单因素方差分析,方差不齐时用 Brown–Forsythe与Welch 方差分析。*p<0.05,**p<0.01,***p<0.001,****p<0.0001;不同字母代表组间显著差异。载体图由VectorBuilder 制作;实验方案图由 BioRender 制作(原文链接 g53o551)。
03|在老龄小鼠骨骼肌中成功过表达 NOR-1
研究者进一步检验体内NOR-1 AAV 能否提高老龄骨骼肌 PERM1、CKMT2、PGC-1α 和肌红蛋白表达,并伴随肌肉功能变化。结果段称,向 24 月龄雌雄小鼠一侧胫骨前肌及腓肠肌注射NOR-1 AAV,向对侧相应肌肉注射 GFP AAV,构建同一动物内对照;第5 周测定跖屈肌峰值力矩和易疲劳性,第 6 周采集组织并测定呼吸(图 3A)。相对于 GFP 注射侧,NOR-1 AAV 注射腓肠肌的 NOR-1 mRNA 增加 72 倍(p<0.0001;d=2.36;图 3B),蛋白丰度增加 2.2 倍(p=0.0006;d=3.63;图 3C)。AAV 注射与 PBS 注射动物的肝脏 NOR-1 蛋白含量未见差异(p=0.8497;d=0.17;图 3D)。
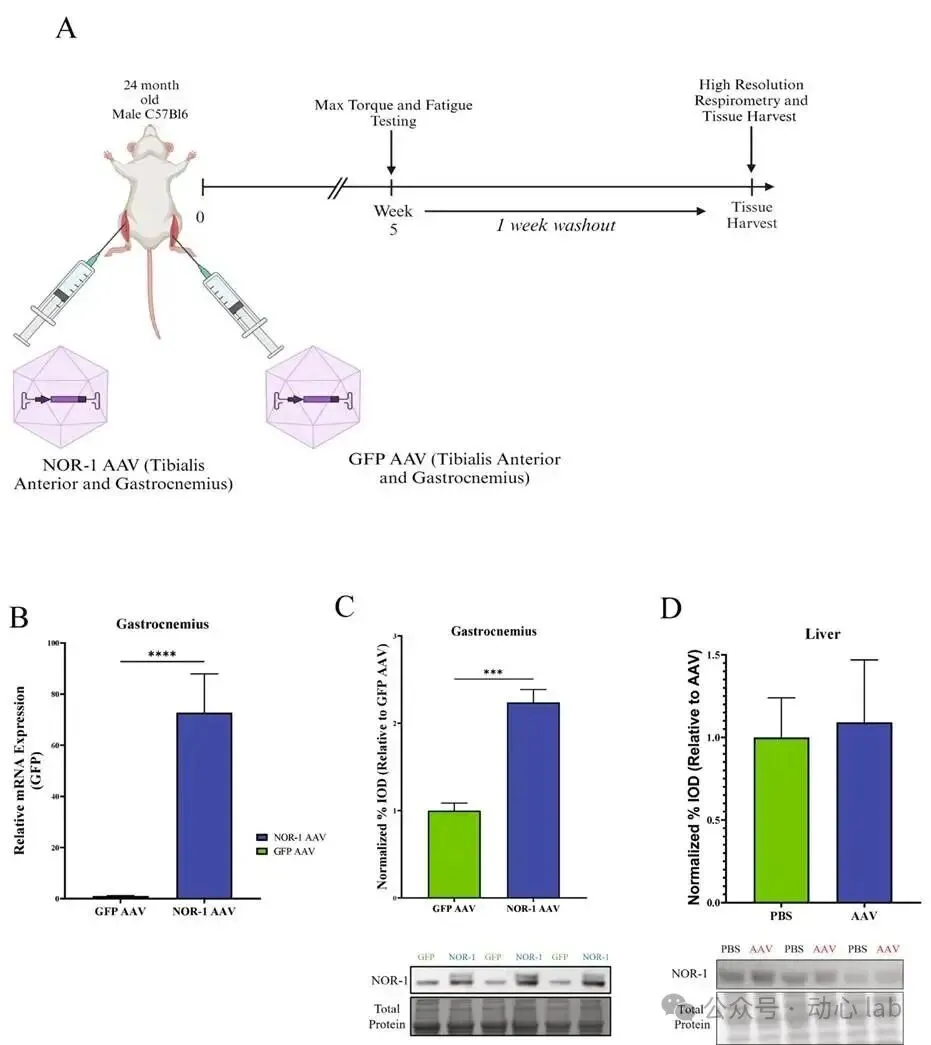
图 3|体内过表达 NOR-1。(A)在 24 月龄小鼠双侧胫骨前肌和腓肠肌分别注射表达 NOR-1/GFP 或仅 GFP 的 AAV;5 周后测功能,间隔 1 周以排除功能测试影响;第 6 周取胫骨前肌进行高分辨率呼吸与组织学,取腓肠肌验证NOR-1 过表达并分析潜在靶基因。(B)腓肠肌NOR-1 mRNA(每组n=8)。(C)腓肠肌 NOR-1 蛋白丰度(每组 n=8)。(D)AAV 与 PBS 注射小鼠肝脏 NOR-1 蛋白含量(每组 n=3)。HPRT 为内参;均值±SEM。(B、C)比值配对 t 检验,(D)非配对 t 检验;***p<0.001,****p<0.0001。方案图由 BioRender 制作(原文链接 n43b575)。
04|NOR-1 提高老龄骨骼肌呼吸和抗疲劳能力,但不提高峰值力矩
在老龄小鼠骨骼肌中成功过表达NOR-1 后,跖屈肌峰值力矩并无显著改变(图 4A)。然而,在疲劳测试力矩下降的线性阶段,NOR-1 AAV 注射侧的疲劳速率低于 GFP 注射侧(p=0.0371;d=−0.90;图 4B);达到峰值力矩后第 10、20、30、40 次收缩时,其相对力矩也更高(图 4C),提示重复收缩过程中保持收缩强度的能力提高。
高分辨率呼吸测定显示,NOR-1过表达未改变胫骨前肌复合物Ⅰ底物支持的 LEAK 呼吸(p=0.4213;d=0.07),但提高复合物Ⅰ支持的 OXPHOS 呼吸(p=0.0231;d=0.85)、复合物Ⅰ+Ⅱ支持的 OXPHOS 呼吸(p=0.0215;d=1.22)以及复合物Ⅰ+Ⅱ支持的最大电子传递系统容量(p=0.0075;d=1.25;图 4D)。与体外实验一致,NOR-1 AAV 腓肠肌的肌红蛋白(p=0.0011;d=1.28)、PERM1(p=0.0039;d=1.23)、CKMT2(p=0.0021;d=1.32)和 PGC-1α(p=0.0492;d=0.48)基因表达均升高(图 4E)。
此外,肌球蛋白重链ⅡB 型 mRNA 显著下降(p=0.0404;d=−1.00);Ⅰ型(p=0.1094;d=0.93)和ⅡA 型(p=0.0844;d=0.53)呈上升趋势,但均未达显著性(图 4F)。作者据此推测,肌球蛋白重链基因表达可能由偏糖酵解的纤维类型向较小、收缩较慢、氧化能力更高的类型转变;本研究并未通过纤维类型特异性分析直接证实类型转换。
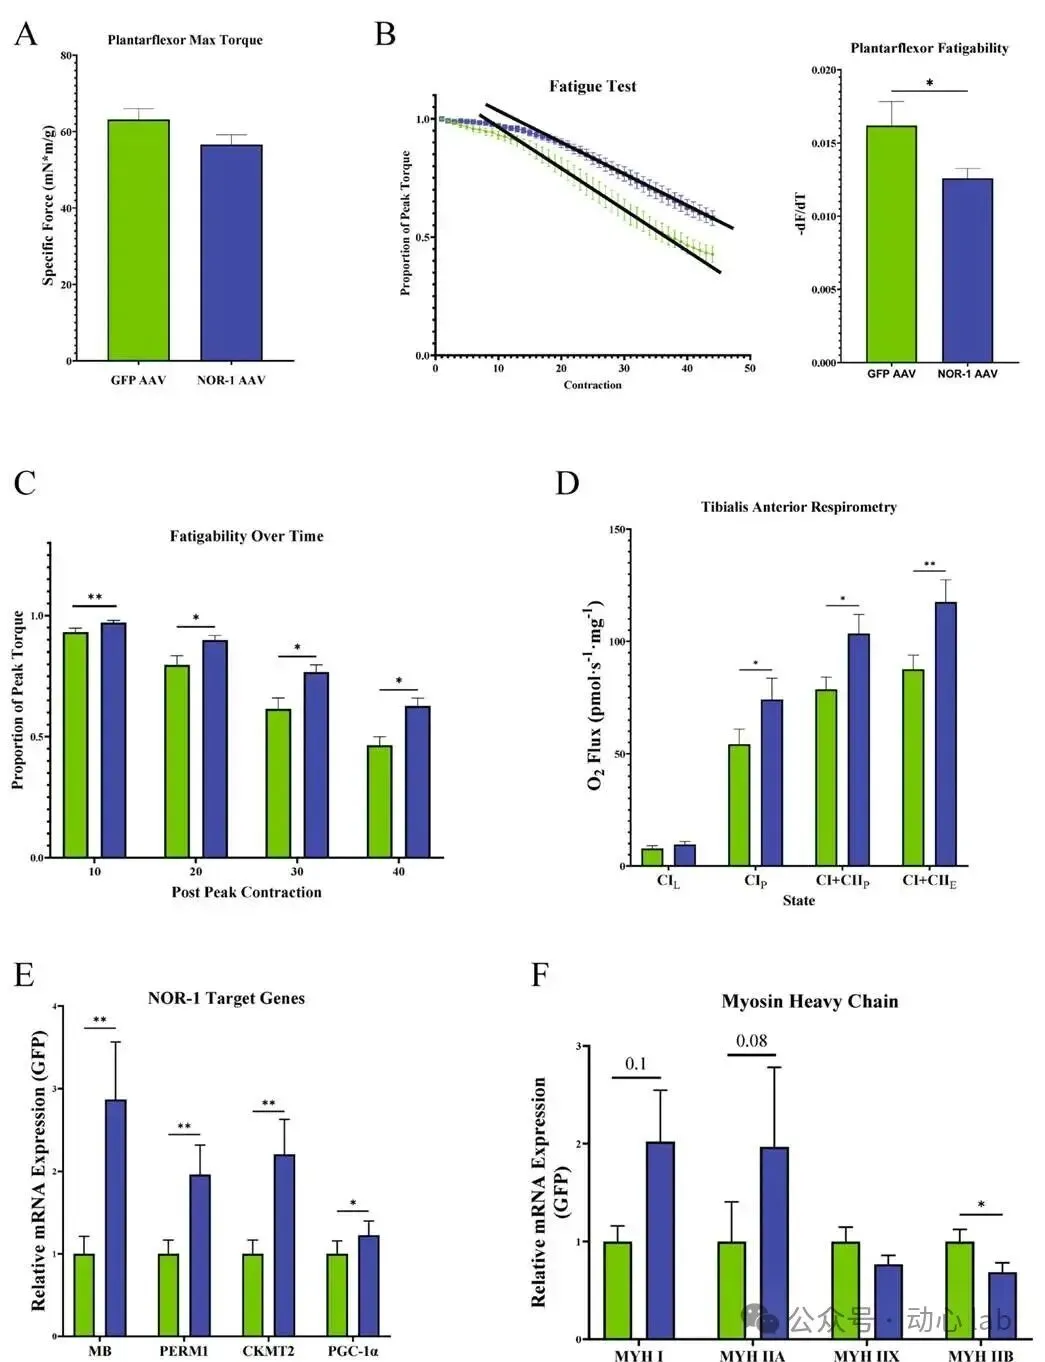
图 4|体内 NOR-1 过表达对肌肉功能和靶基因表达的影响。(A)NOR-1 与 GFP AAV 注射侧的单位肌重力矩(每组 n=10)。(B)疲劳测试中达到峰值后的力矩下降及线性区间疲劳斜率〔−dF/dT;每组 n=10〕。(C)峰值后不同收缩次数处维持的相对力矩(每组n=10)。(D)胫骨前肌透化肌纤维高分辨率呼吸(每组n=8)。(E)腓肠肌 NOR-1 靶基因表达(每组 n=8)。(F)腓肠肌肌球蛋白重链亚型基因表达(每组n=8)。HPRT为内参;均值±SEM;比值配对 t 检验或配对 Wilcoxon 符号秩检验。*p<0.05,**p<0.01。
05|NOR-1 过表达伴随肌肉湿重略降及自噬相关信号改变
研究者进一步检查NOR-1 过表达对肌量的影响。腓肠肌湿重下降 5%(p=0.0159;d=−0.45),胫骨前肌湿重下降 12%(p=0.0033;d=−1.23;图 5A)。胫骨前肌 GFP 阳性纤维平均横截面积及最小 Feret 直径分析未显示纤维大小显著降低,尽管平均横截面积有下降趋势(p=0.0698;d=−0.74;图 5B、C)。纤维分布中,小纤维(0–600 μm²)比例有升高趋势(p=0.0609;d=1.11),中等纤维(600–1200 μm²)无变化(p=0.7986;d=0.03),大纤维(>1200 μm²)比例则显著降低(p=0.0085;d=−1.22;图 5D)。
既往研究发现,NOR-1敲低损害 mTORC1 信号,²⁷且 NOR-1 可能参与自噬调控。²⁴在本研究中,NOR-1 过表达提高 LC3-Ⅱ 蛋白及 LC3-Ⅱ/Ⅰ 比值,但未改变 LC3-Ⅰ(图 5E);Parkin 蛋白明显下降(图 5F),p62 蛋白有幅度较小但显著的下降(图 5G)。此外,mTOR 磷酸化增加(图 5H),而 mTORC1 下游靶标核糖体蛋白 S6的磷酸化未见变化(图 5I)。总之,在老龄骨骼肌中长期过表达NOR-1 伴随肌重轻度降低、纤维大小分布变化、自噬相关标志物变化及 mTOR 磷酸化升高。仅凭这些静态蛋白指标尚不能判定自噬通量是否增加。
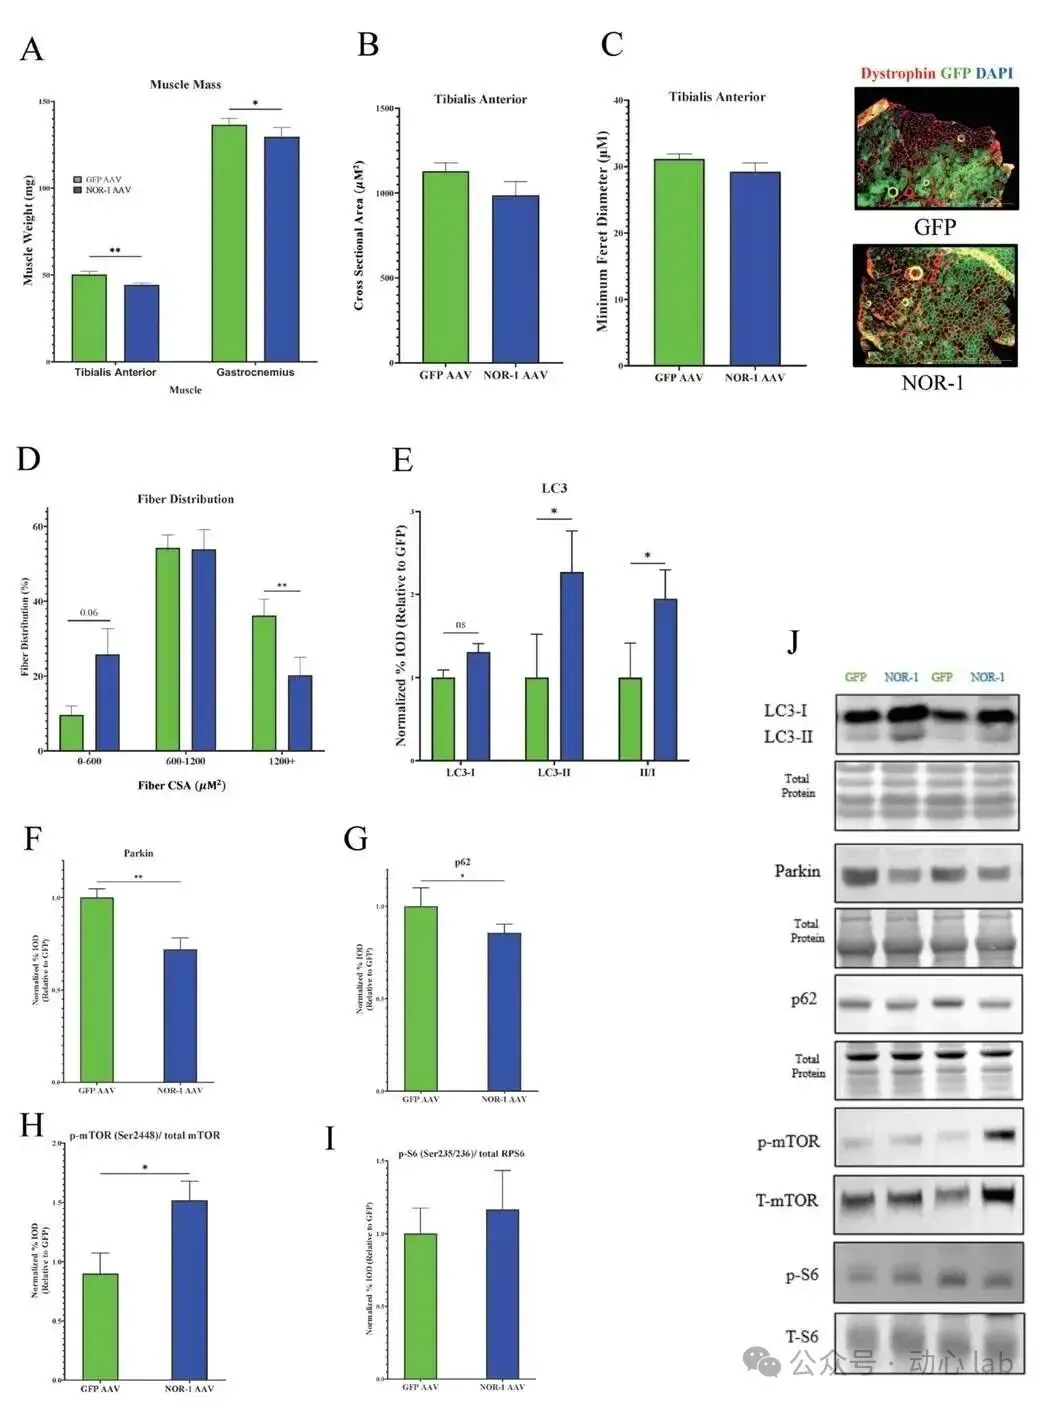
图 5|NOR-1过表达对老龄骨骼肌大小及信号的影响。(A)AAV注射6 周后胫骨前肌与腓肠肌湿重(每组 n=11)。(B)胫骨前肌 GFP 阳性纤维平均横截面积、(C)最小 Feret 直径及代表性 GFP 阳性纤维图像(每组 n=8;原图比例尺标为“1000 μM”,疑为长度单位排印问题)。(D)按横截面积分为小(0–600 μm²)、中(600–1200 μm²)和大(>1200 μm²)的胫骨前肌纤维比例(每组 n=8)。(E)腓肠肌 LC3-Ⅰ/Ⅱ、(F)Parkin、(G)p62、(H)mTOR Ser2448 磷酸化、(I)S6 Ser235/236 磷酸化的免疫印迹分析;(J)代表性条带。均值±SEM;比值配对 t 检验或配对 Wilcoxon 符号秩检验。*p<0.05,**p<0.01。
Discussion
讨论
骨骼肌衰老常伴随线粒体功能下降、⁴²肌肉功能受损⁴³–⁴⁵及肌量减少。⁴⁶目前,运动仍是改善老年人肌肉功能和肌量的有效干预之一。⁸,⁴¹但活动障碍、合并症或训练参与受限可能使部分老年人难以进行较剧烈运动。因此,研究运动作用机制有助于发现可干预的促健康靶点。尽管 NOR-1 对急性运动的反应已得到二十余年的关注,⁴⁷本研究进一步分析了不同运动方式、持续时间与强度如何改变 NOR-1 表达,并发现老龄骨骼肌中的NOR-1 表达下降。
这些数据与 NOR-1 敲低可降低 PGC-1α 表达²⁵及 NOR-1 过表达小鼠肌红蛋白表达升高³⁵的既有结果相符。本研究进一步揭示了NOR-1 以依赖 PERM1 的方式上调肌红蛋白的信号关系。既往关于 NOR-1 过表达与耐力的研究采用跑台表现作为终点,³⁵该终点同时依赖骨骼肌和心血管表现。通过直接诱发肌肉收缩,本研究表明 NOR-1 过表达可降低肌肉易疲劳性,并伴随线粒体呼吸能力提高;不过最大力矩并未显著改变。
一个出乎预料的结果是,NOR-1过表达使肌肉湿重下降,大纤维所占比例降低。这或与表型向横截面积较小、氧化能力较高的Ⅰ型纤维转变有关,但本研究没有直接测定纤维类型特异性的转换。已有研究显示,NOR-1 的磷酸化可使其从细胞核输出并定位于线粒体,⁴⁸,⁴⁹然而 NOR-1 翻译后修饰在骨骼肌中的意义仍不明确。作者还指出,虽然 CMV 启动子有利于获得较高表达,却也可能使运动神经元或肌肉组织中的单核细胞(如免疫细胞、卫星细胞、成纤维细胞)过表达 NOR-1,进而影响肌量。
虽然本研究未专门解析NOR-1 调节肌量的机制,但在 NOR-1 AAV 转导肌肉中观察到自噬相关标志物改变:LC3-Ⅱ 及 LC3-Ⅱ/Ⅰ 比值升高,Parkin 和 p62 蛋白含量中度下降。可能有部分被转导肌纤维出现自噬相关变化并继发萎缩;先前 NOR-1 过表达动物研究也观察到 LC3-Ⅱ 增加及 p62 减少等现象。²⁴这些静态测量仍不足以直接证明自噬通量加快。
作者承认若干局限。第一,CMV启动子虽可提高 NOR-1 表达,却可能使注射肌肉内的其他细胞同时过表达 NOR-1;因此,不能排除非肌细胞对肌量和功能的有利或不利影响。另一方面,未来以药物增强 NOR-1 表达或活性的策略也可能影响非肌肉组织。第二,研究仅检测等长收缩;等速或向心收缩可能产生不同反应。第三,缺乏纤维类型特异性分析,因此无法判断 NOR-1 是否在不同纤维类型中存在翻译效率差异。
总体而言,NOR-1 过表达改善了等长收缩时的抗疲劳能力和骨骼肌最大线粒体呼吸,但老龄及肌少症往往同时存在快肌纤维萎缩、峰值力量下降和肌量降低。NOR-1 诱导的较小、较氧化的表型及较低肌重,可能加重其中某些不利特征;另一方面,Ⅰ型纤维比例增多理论上可能提高对后续肌少症发展的抵抗能力。NOR-1 还被认为参与神经元存活调节,⁵⁰而运动神经元功能障碍是老龄相关肌肉功能下降的重要因素。值得注意的是,本研究肌量下降而单位肌重力矩未改变。今后需要研究 NOR-1 是否影响神经肌肉接头,并通过转基因小鼠及 NOR-1 突变体(如不能被磷酸化的形式)进一步厘清其功能与治疗潜力。
Methods
研究材料与方法
2.1 动物
全部实验方案均经田纳西大学健康科学中心机构动物护理与使用委员会批准。体内实验使用购自 Jackson Laboratories(美国马萨诸塞州)的年轻(5月龄)或老龄(24 月龄)雄性 C57BL6 小鼠。研究者根据本实验室预实验和已发表数据,以肌纤维横截面积、肌肉湿重和最大肌力为变量进行事前样本量估算:在检验效能为 0.80、α=0.05 的条件下,各实验组需 8 只动物。
2.2 组织采集
处死时以 3%–5% 异氟烷充分麻醉小鼠,迅速分离并称量组织。采集肝脏以核实局部肌内注射腺相关病毒(AAV)颗粒未在非靶器官造成 NOR-1 蛋白丰度升高;选择肝脏是因为 AAV9 对肝脏具有较强嗜性。胫骨前肌近端的一部分置于保存液,用于高分辨率呼吸测定;其余胫骨前肌在液氮冷却的 2-甲基丁烷中冷冻。腓肠肌剔除多余结缔组织、称重并分为两部分,随后在液氮中速冻,−80 °C 保存;两部分分别用于 RNA 提取/qPCR 与免疫印迹。
2.3 高分辨率呼吸测定
采用Oxygraph-2k 高分辨率呼吸仪(Oroboros Instruments,奥地利因斯布鲁克),在37 °C、氧浓度 250–550 μM 条件下,以骨骼肌湿重归一化测定线粒体氧通量〔pmol·s⁻¹·mg⁻¹〕。³⁶ 每个腔室加入 2.0 mL MiR05 呼吸介质:0.5 mM EGTA、3 mM MgCl₂、60 mM 乳糖酸钾、20 mM 牛磺酸、10 mM KH₂PO₄、20 mM HEPES、110 mM 蔗糖及 1 g/L BSA,并以 KOH 调至 pH 7.1。
从新鲜胫骨前肌近端剪取1–5 mg 组织,置于冰上 BIOPS 保存液〔10 mM Ca-EGTA 缓冲液、0.1 μM 游离 Ca²⁺、20 mM 咪唑、20 mM 牛磺酸、50 mM K-MES、0.5 mM DTT、6.56 mM MgCl₂、5.77 mM ATP、15 mM 磷酸肌酸,pH 7.1〕。在冰上以镊子分离肌纤维束,不超过 5 min;然后在含 50 μg/mL 皂苷的 BIOPS 中于 4 °C 透化 30 min,再以 MiR05 清洗 20 min。透化后置于Whatman 滤纸上吸干 30 s,在不超过 30 s 内称重并放入呼吸仪腔室。DatLab 7.3 软件每 2 s 记录一次数据。
依次加入底物、解偶联剂和抑制剂:(1)5 mM 丙酮酸、2 mM 苹果酸及 10 mM 谷氨酸,测定复合物Ⅰ底物支持的 LEAK 呼吸(CIᴸ);(2)5 mM ADP,测定复合物Ⅰ支持的最大状态 3/OXPHOS 呼吸(CIᴾ);(3)10 μM 细胞色素 c,检查线粒体外膜完整性,加入后呼吸增加 >15% 的腔室数据予以剔除;(4)10 mM 琥珀酸,测定复合物Ⅰ和Ⅱ汇合供电子时的最大状态 3/OXPHOS 呼吸(CI+IIᴾ);(5)每次递增 0.05 μM 的 CCCP,测定复合物Ⅰ和Ⅱ支持的电子传递系统容量(CI+IIᴱ);(6)2.5 μM 抗霉素 A 抑制复合物Ⅲ,测定非线粒体残余耗氧量,用以校正其他结果。所有呼吸数据均按入腔前组织湿重归一化。小鼠均禁食 5 h,并于当地时间10:00–12:00 处死,以降低昼夜节律差异。
2.4 组织学分析
如前所述,³⁷在 −20 °C 将肌肉切为 8 μm 厚横切片,贴附于带电玻片,免疫细胞化学染色前保存于 −80 °C。切片风干 10 min 后,以预冷 4% 多聚甲醛固定 10 min,PBS 复水 10 min,再以 2.5% 正常山羊血清于室温封闭 1 h。抗肌营养不良蛋白一抗MANDYS8(8H11;IgG2b,DSHB)于 4 °C 孵育过夜;次日 PBS 洗涤 3 次,每次 5 min,再以含 2 μg/mL Alexa Fluor 抗鼠 IgG2b 二抗(A21146)的 PBS 孵育。用 Biotek Lionheart FX 自动显微镜采集肌肉横切片荧光图像(激发/发射 628/685 nm)。从随机选择的 2–3个 10× 视野,使用 MyoVision 软件³⁸测定胫骨前肌 GFP 阳性纤维的横截面积和最小 Feret 直径。
2.5 免疫印迹
以含 5 mM EDTA及 1× Halt 蛋白酶/磷酸酶抑制剂的冰冷 RIPA 缓冲液裂解 C2C12 细胞及腓肠肌组织。用 DC 蛋白测定试剂盒比色定量蛋白。取约 20 μg 细胞或组织裂解液进行SDS-PAGE 分离,并转移至 PVDF 膜;用 No-Stain蛋白标记试剂染膜,以总蛋白作为归一化依据,随后在含 5% BSA 的 TBST 中封闭。²⁷ 一抗以 1:1000 用 TBST 稀释,4 °C 孵育过夜;抗兔或抗鼠 IgG 二抗以 1:10 000 稀释,室温孵育 1 h。用 iBright FL1500 系统进行成像和分析。一、二抗详见表 1。
表 1|抗体生产商及货号
一抗 | 生产商/货号 | 二抗 | 生产商/货号 |
mTOR | Cell Signaling/2972S | 抗兔 IgG | Cell Signaling/7074 |
磷酸化 mTOR(Ser2448) | Cell Signaling/2971S | 抗兔 IgG | Cell Signaling/7074 |
S6 | Cell Signaling/2217S | 抗兔 IgG | Cell Signaling/7074 |
磷酸化 S6(Ser235/236) | Cell Signaling/62016S | 抗鼠 IgG | Cell Signaling/7076 |
LC3 | Cell Signaling/4108S | 抗兔 IgG | Cell Signaling/7074 |
NR4A3/NOR-1 | Sigma-Aldrich/ABE1456 | 抗兔 IgG | Cell Signaling/7074 |
肌营养不良蛋白 | DSHB/AB 2618170 | 抗鼠 IgG2b | Invitrogen/A-21146 |
Parkin | Cell Signaling/2132S | 抗兔 IgG | Cell Signaling/7074 |
p62 | Invitrogen/MAS-46931 | 抗兔 IgG | Cell Signaling/7074 |
表注|所用抗体来自提供测试与生产验证资料的供应商;研究期间各抗体批次保持一致。作者还用免疫印迹验证条带是否出现在预期分子量位置。
2.6 RNA 提取与实时定量 PCR
依照生产商说明,用TRIzol 从完整肌肉或 C2C12 来源细胞中提取总 RNA。经酚/氯仿萃取后,加入等体积70% 乙醇,使用 PureLink RNA Mini Kit 纯化并以无核酸酶水洗脱。测定RNA 浓度和 260/280 比值;260/280 <1.9 的样本不纳入 PCR 分析。约 1 μg RNA 经 DNase 处理去除基因组 DNA 污染后,使用 High-Capacity cDNA Reverse Transcription Kit 逆转录。实时 qPCR 条件为 50 °C 2 min、95 °C 10 s,继以 40 个循环(95 °C 15 s;60 °C 60 s)。融解曲线步骤为 95 °C 15 s、60 °C 60 s、95 °C 15 s;出现多个峰的样本不纳入分析。采用比较Ct 法(2⁻ΔΔCt)估算转录本相对表达水平。引物见表 2、表 3。
表 2|实时定量 PCR 引物(5′→3′)
基因 | 正向引物 | 反向引物 |
PERM1 | ATAGCTCCATGGCCCTAGCTG | TGGAAGAACCAGGGACAGAC |
HPRT | AGGGATTTGAATCACGTTTG | TTTACTGGCAACATCAACAG |
MYHI | TGGACCCACGGTCGAAGTTG | CCATCTCGGCGTCGGAACTC |
MYHIIA | AAGCGAAGAGTAAGGCTGTC | CTTGCAAAGGAACTTGGGCTC |
MYHIIB | GAAGAGCCGAGAGGTTCACAC | CAGGACAGTGACAAAGAACGTC |
MYHIIX | GAAGAGTGATTGATCCAAGTG | TATCTCCCAAAGTTATGAGTACA |
CKMT2 | TGTCTGAGATGACGGAGCAG | CCTGGTGTGGTCTTCCTCAT |
肌红蛋白 | AGCCCACACTCTCTCCTTTTGT | CAGGGTCTCAGGGTGAGTCT |
COQ3 | CTCTCGTGGGGTTCGTCTCC | CACCGAGTTCCCACGGCTTA |
ATP5A1 | TTGACCTTCCTTTGCGCTCG | GCACCAACAAAGGATGACCCC |
ANT1 | TCTGCTTCGTCTACCCGCTG | TTCCGGCCAGACTGCATCAT |
ABRA/STARS | TCAAACGCCCCTTGCTCTC | CGTGTTCATCGGCCCACT |
表注|各基因用于 qPCR 分析的正向和反向引物序列。
表 3|IDT 预设计实时定量 PCR 检测体系
基因 | IDT 预设计引物检测体系编号 |
NR4A3 | Mm.PT.58.29947344 |
MFN2 | Mm.PT.58.6479342 |
PGC-1α | Mm.PT.58.17390716 |
TFAM | Mm.PT.58.17630094 |
2.7 细胞培养条件
C2C12 细胞购自 ATCC,以含 10% 胎牛血清及 1% 抗生素/抗真菌制剂的 DMEM 生长培养基扩增。实验所用细胞均传代超过 15 代,维持于 37 °C、5% CO₂ 的湿润培养箱。细胞汇合度达 70% 时,将生长培养基更换为含 2% 热灭活马血清及 1% 抗生素/抗真菌制剂的 DMEM 分化培养基,诱导肌母细胞分化。
2.8 细胞处理
C2C12 肌管分化 3 d 后,按感染复数(MOI)1.6×10⁶ 加入 AAV9。NOR-1 载体以 CMV 启动子驱动全长 NOR-1 转录本,通过 T2A 连接序列与 eGFP 相连;对照载体在 CMV 启动子控制下表达 eGFP(载体图见图 2A)。AAV 与肌管共孵育 48 h 后换液,于感染后第 7 天(分化第 10 天)收集细胞。
PERM1 siRNA 敲低实验中,于 AAV 感染后第 5 天开始,以 50 nM 靶向 PERM1 的 siRNA(Qiagen FlexiTube,S10081342)或阴性对照 siRNA(Invitrogen,4390843)处理肌管 48 h,转染使用 Lipofectamine RNAiMAX(3.5 μL/mL)。实验流程见图 2E。选择感染后第 7 天作为终点,是因为肌管中 GFP 荧光显现需要相应时间。
2.9 体内过表达 NOR-1
向 24 月龄雄性 C57BL6 小鼠的一侧胫骨前肌和腓肠肌分别注射 4×10¹¹ 与 6×10¹¹ 个 AAV9 颗粒;载体由 CMV 启动子驱动,通过 T2A 序列共表达 NOR-1 和 eGFP。对侧肢体注射表达 eGFP 的 AAV9,作为同一动物的对照。注射后第 5 周测试肌肉功能;第 6 周在禁食 5 h 后采集组织并开展高分辨率呼吸测定(见图 3A)。由于 AAV9 有肝细胞嗜性,比较 AAV 与 PBS 注射小鼠肝脏中的 NOR-1 蛋白含量,以评估肌内注射是否带来非靶器官表达。
2.10 急性运动方案
5 月龄雌雄 C57BL6 小鼠接受急性跑台运动:运动前禁食1 h,以 5 m/min 热身 5 min,随后在恒定 3% 坡度下以 12 m/min 跑 15、30 或 45 min(图 1A)。运动后恢复 1 h,测定腓肠肌 NOR-1 基因表达。对照组不运动,但采样前禁食 3 h;qPCR 以 HPRT 为内参。
为评估收缩强度的影响,将5 月龄雌雄小鼠用异氟烷麻醉,在胫神经两侧放置皮下电极,以脉宽 200 μs、频率 10、25 或 50 Hz 的电刺激诱发跖屈等长收缩。上述频率均低于可产生最大力量的 100 Hz。³⁷,³⁹ 将足部固定于测力仪踏板,踝关节保持 90°。方案为每组 8 次等长收缩,共 5 组,组内每次间隔 1 s,组间休息 2 min,模拟人体抗阻运动;实验后回笼休息 1 h 再采集组织。各组在运动前 1 h 及恢复期均不予进食。实验流程和刺激频率对应的力矩变化见图 1C、D。
2.11 肌肉功能测试
AAV 注射后第 5 周,分别评估表达 NOR-1 和 GFP 的两侧肢体的峰值力矩及易疲劳性。小鼠异氟烷麻醉后,将后肢固定于测力仪踏板,踝关节为 90°;在胫神经附近置皮下电极,施加脉宽200 μs、频率 100 Hz 的刺激以获取最大诱发力。恢复 3 min 后,以 40 Hz 频率、200 μs 脉宽连续诱发 75 次收缩,每次持续 0.1 s,相邻收缩间隔 1 s。
参考已发表方案并作调整,³⁹以疲劳测试中力矩下降曲线的线性阶段斜率估计疲劳速率;初始约 25 次收缩及末段的非线性区间不用于计算。用LabChart 离线分析力矩,将力矩按跖屈肌群(腓肠肌、比目鱼肌、跖肌)总重量归一化,并将疲劳试验序列归一化至序列中的峰值力矩。选取线性拟合达到 R²≥0.98 的区间,用 Δ力/Δ时间的斜率表示疲劳速率。
2.12 统计学
数据表示为均值±标准误(SEM)。表达 GFP 和 NOR-1 的肌管组间比较通常采用非配对 t 检验;PERM1 siRNA 实验采用单因素方差分析及 Tukey 事后多重比较。体内配对肢体比较采用比值配对 t 检验,运动反应组间比较采用单因素方差分析;年龄组及 AAV/PBS 注射小鼠肝脏 NOR-1 比较采用非配对 t 检验。通过 Shapiro–Wilk 检验评估正态性:不符合正态分布的多组数据采用 Kruskal–Wallis 检验及 Dunn 事后比较;方差不齐时采用 Brown–Forsythe 和 Welch 方差分析及 Dunnett 事后比较;两组非正态数据分别采用配对的 Wilcoxon 符号秩检验或非配对的Mann–Whitney 检验。图中字母 A、B、C 表示组间显著差异。使用 GraphPad Prism 分析,显著性阈值为p≤0.05,以 Cohen’s d 表示效应量。分析者对处理分组保持盲法。